Interazzjonijiet Geminivirus-Host: Azzjoni U Reazzjoni fl-Immunità Antivirali Medjata mir-Riċetturi
Apr 04, 2023
Astratt:
Fl-interazzjonijiet tal-pjanti-virus, is-sistema immunitarja tal-pjanti u l-istrateġiji ta 'virulenza huma taħt pressjoni kostanti għal dominanza, u l-bilanċ ta' dawn il-pressjonijiet ta 'għażla opposti jista' jirriżulta f'mard jew reżistenza. Id-difiża immuni antivirali tal-pjanti li tevolvi b'mod naturali tikkonsisti minn sistema ta 'perċezzjoni b'ħafna saffi rappreżentata minn riċetturi ta' rikonoxximent tal-mudell (PRR) u proteini ta 'reżistenza (R) simili għad-difiżi innati tal-patoġenu mhux virali.
Saff ieħor ta 'immunità antivirali, sinjalazzjoni permezz ta' kinażi bħal riċettur tal-wiċċ taċ-ċelluli biex jinibixxi t-traduzzjoni tal-mRNA ospitanti u virali, ġie identifikat bħala mira ta 'virulenza tal-proteina tax-shuttle nukleari tal-geminivirus. Il-familja Geminiviridae tinkludi firxa wiesgħa ta’ viruses li jikkawżaw mard devastanti tal-pjanti f’varjetà kbira ta’ għelejjel u ħxejjex rilevanti u għalhekk evolvew repertorju ta’ funzjonijiet li jrażżnu l-immunità. F'din ir-reviżjoni, niddiskutu s-saffi primarji tas-sistema immuni antivirali medjata mir-riċettur, billi niffokaw fuq il-mekkaniżmi żviluppati minn geminiviruses biex jegħlbu l-immunità tal-pjanti.
Is-sistema immunitarja hija sistema ta 'difiża tal-mard magħmula minn serje ta' strutturi u proċessi bijoloġiċi fil-ġisem. Is-sistema immuni tista 'tiskopri patoġeni u sustanzi ta' ħsara li jvarjaw minn viruses żgħar għal parassiti, u normalment tista 'tiddistingwi dawn is-sustanzi miċ-ċelloli u tessuti b'saħħithom tal-organiżmu.
Il-patoġeni jistgħu jevolvu u jadattaw malajr biex jevitaw skoperta u attakk mis-sistema immuni. Biex tkun tista 'tirbaħ fil-konfrontazzjoni mal-patoġeni, l-organiżmi evolvew varjetà ta' mekkaniżmi biex jirrikonoxxu u jeliminaw il-patoġeni. Anke organiżmi sempliċi ta 'ċellula waħda, bħal batterji, żviluppaw sistemi ta' enzimi li jistgħu jiġġieldu l-infezzjoni tal-fagi. Kif tittejjeb l-immunità tal-ġisem, fir-riċerka sibna li hemm ħafna metodi, bħal eżerċizzju, u teħid ta 'ikel tajjeb għas-saħħa, u sabet li Cistanche jista' wkoll itejjeb l-immunità tal-bniedem, il-polisakkaridi f'Cistanche, echinacoside, u verbascoside jistgħu jtaffu s-saħħa fiżika L-iktar ingredjent effettiv għall-għeja u t-tisħiħ tal-immunità. Il-polisakkaridi ta 'Cistanche huma l-bażi materjali tal-funzjoni ta' regolazzjoni immuni ta 'Cistanche, li jistgħu jippromwovu l-proliferazzjoni ta' limfoċiti, itejbu l-funzjoni immuni tal-ġisem, jattivaw ċelloli immuni, u jtejbu l-immunità taċ-ċelluli T biex jiksbu l-effett li jtejbu l-immunità umana.

Ikklikkja cistanche tubulosa benefiċċji prodott
Kliem ewlieni:
Immunità attivata mill-PAMP; immunità attivata mill-effettitur; difiża antivirali NIK1; Suppressori virali; Effetturi; NIK1; PTI; ETI; geminiviruses.
1. Introduzzjoni
Pjanti, bħal kull organiżmu ieħor, huma ta 'spiss esposti għal infezzjonijiet ikkawżati minn diversità ta' patoġeni. Il-perċezzjoni tal-mikrobi mill-pjanta permezz tal-wiċċ taċ-ċelluli u r-riċetturi intraċellulari hija kruċjali għall-attivazzjoni tad-difiżi tal-pjanti waqt l-attakk tal-patoġenu [1,2].
Bil-maqlub, ir-rikonoxximent tal-ospitant jippermetti lill-patoġenu jattiva strateġiji ta 'virulenza. Is-sistema immuni intrinsika medjata mir-riċettur hija ġeneralment maqsuma f'żewġ linji ta 'difiża. L-ewwel linja ta’ difiża tal-pjanti kontra l-patoġeni hija rappreżentata minn riċetturi ta’ rikonoxximent tal-mudell lokalizzati fil-wiċċ taċ-ċelluli (PRRs), li jħossu u jagħrfu mudelli molekulari assoċjati mal-patoġeni (PAMPs) ippreżentati mill-patoġeni, jew mudelli molekulari assoċjati mal-periklu (DAMPs), endoġeni. sinjali rilaxxati mill-host mal-infezzjoni [3,4]. Fuq ir-rikonoxximent tal-PAMP, il-PRRs huma attivati biex jibdew immunità attivata minn PAMP (PTI), barriera tad-difiża relattivament dgħajfa li tinibixxi l-biċċa l-kbira tal-organiżmi li jinvaduh [5,6]. Studji reċenti wrew li l-viruses, bħall-patoġeni mhux virali, kemm jattivaw kif ukoll irażżnu r-risponsi bħal PTI [7]. Għalhekk, infezzjoni b'suċċess tiddependi fuq soppressjoni tal-PTI minn effetturi tal-virulenza li jqanqlu suxxettibilità attivata mill-effettitur (ETS) [8-10].
Biex jegħlbu dawn l-istrateġiji ta’ virulenza, iċ-ċelloli tal-pjanti evolvew tieni linja ta’ difiża msejħa immunità attivata mill-effettituri (ETI), attivata f’ġenotipi reżistenti fuq interazzjonijiet speċifiċi bejn riċetturi intraċellulari ospitanti (proteini ta’ reżistenza; R) u effetturi tal-avirulenza tal-patoġeni (Avr) [11]. ].
Għalhekk, ħafna effetturi li jattivaw ETI (fatturi ta 'avirulenza) f'ġenotipi reżistenti evolvew biex irażżnu PTI bħala fatturi ta' virulenza [8,12]. L-effettituri tal-patoġeni mhux virali jitwasslu fl-apoplast jew jiġu injettati fiċ-ċitoplasma taċ-ċelloli tal-pjanti permezz ta' sistema ta' sekrezzjoni mikrobjali [13]. B'kuntrast, l-effettituri virali huma sintetizzati intraċellulari u jippromwovu l-virulenza billi jinterferixxu mal-komponenti tas-sistema ta 'difiża ospitanti [7,14]. Minħabba l-kapaċità ta 'kodifikazzjoni limitata tal-ġenomi virali, prattikament il-proteini kollha kodifikati bil-virus, inklużi l-proteini essenzjali meħtieġa għall-infezzjoni, jistgħu jaħdmu bħala fatturi ta' avirulenza f'ġenotipi li jħaddnu l-ġene R konness. Għalhekk, fatturi ta 'virulenza virali ħafna drabi huma meħtieġa għal infezzjoni b'suċċess u kważi invarjabbilment jaġixxu bħala fatturi ta' virulenza f'ospiti suxxettibbli. L-effettituri virali huma kkunsidrati hawnhekk bħala proteini kodifikati bil-virus li jinterferixxu mad-difiżi ospitanti biex jippromwovu l-virulenza.
Saff ieħor ta 'immunità antivirali jikkorrispondi għad-difiża antivirali medjata minn kinase 1 (NIK1) li taqbel mal-kinase transmembrane like kinase shuttle protein (NSP) li ħafna drabi hija mrażżna mill-geminivirus nuclear shuttle protein (NSP) [15]. Is-sinjalar antivirali medjat minn NIK1-intwera li jrażżan it-traduzzjoni globali tal-host biex jiġġieled il-geminiviruses u l-virus tar-rattle tat-tabakk (TRV) [16–18]. Din il-minireviżjoni tiffoka fuq it-tliet saffi ta 'immunità antivirali tal-pjanti medjata mir-riċetturi (PTI, ETI, u sinjalazzjoni antivirali medjata minn NIK1-) u tiddeskrivi l-istrateġiji ta' virulenza evolvew minn geminiviruses biex jegħlbu dawn l-ostakli tad-difiża tal-host. Niddiskutu wkoll l-interazzjoni tal-PTI antibatteriċi mas-sinjalar antivirali medjat minn NIK1-, li jista' jevita l-inibizzjoni NIK1 mill-NSP tal-geminivirus.
2. Organizzazzjoni tal-Ġenoma ta' Geminiviruses (Familja Geminiviridae)
Il-familja Geminiviridae tirrappreżenta grupp ta 'viruses tad-DNA tal-pjanti li jikkawżaw mard serju f'ħafna uċuħ tar-raba', restrizzjoni kbira għall-produttività agrikola u s-sigurtà tal-ikel. Din il-familja tinkludi disa' ġeneri (Mastrevirus, Eragrovirus, Becurtovirus, Capulavirus, Curtovirus, Topocuvirus, Turncurtovirus, Grablovirus u Begomovirus), li jinkludu viruses b'ġenomi tad-DNA monopartiti jew bipartiti ċirkolari b'linja waħda ta' 2.6 sa 3.0 kb. [19] (Figura 1). Il-ġenomi virali jirreplikaw permezz ta' intermedji dsDNA li fihom fergħat ta' sens komplementari (CS) u virion-sens (VS) (Figura 1).
Proteini kodifikati mill-linja CS jissejħu C1-C5 u mill-linja VS, V1 u V2. F'begomoviruses bipartiti, id-denominazzjonijiet ORF jinkorporaw A (AC1−AC5, AV1−AV2) jew B (BC1, BV1) minn DNA-A u DNA-B. Dawn id-denominazzjonijiet spiss jiġu sostitwiti b'funzjoni tal-proteina, inkluż proteina inizjatur tar-replikazzjoni (Rep/AC1/C1), proteina attivatur tat-traskrizzjoni (TrAP/AC2/C2), proteina li jsaħħaħ ir-replikazzjoni (REn/AC3/C3), proteina tal-kisja (CP), moviment proteina (MP/BC1), u proteina shuttle nukleari (NSP/BV1). Minħabba l-kapaċità ta 'kodifikazzjoni limitata tal-ġenomi virali, il-proteini kodifikati evolvew fi proteini multifunzjonali biex iħaddnu kemm il-funzjonijiet li jsostnu ċ-ċiklu tal-virus kif ukoll li jrażżnu l-immunità tal-ospitanti.
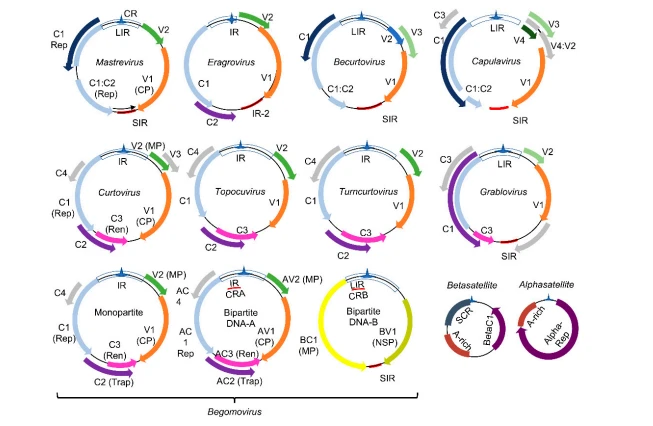
Figura 1. Organizzazzjoni ġenomika ta 'geminiviruses (familja Geminiviridae): Il-familja Geminiviridae tinkludi disa' ġeneri rappreżentati minn speċi monopartiti jew bipartiti. LIR tindika r-reġjun interġeniku twil, SIR, ir-reġjun interġeniku qasir, u CR, ir-reġjun komuni. Il-proteina tal-inizjatur tar-replikazzjoni tal-proteini virali, Rep (C1), u l-proteina li jsaħħaħ ir-replikazzjoni, Ren (C3), huma assoċjati mar-replikazzjoni, u l-proteina attivatur tat-traskrizzjoni, Nassa (C2), bit-traskrizzjoni ta 'ġeni virali u ospitanti; AC4 huwa fattur ta 'virulenza. Il-proteina tal-kapsid (CP) hija indikata fil-ġenomi monopartiti u bipartiti. Fi speċi monopartiti, V2 jirrappreżenta l-proteina tal-moviment (MP).
F'begomoviruses bipartiti, MP (BC1) huwa kodifikat mid-DNA-B li jikkodifika wkoll il-proteina shuttle nukleari, NSP (BV1), li tiffaċilita l-moviment nukleoċitoplasmiku tad-DNA virali. Il-begomoviruses bipartiti ħafna drabi huma assoċjati ma' satelliti tad-DNA: is-satelliti alfa, li jikkodifikaw proteina ta' replikazzjoni (Rep), u s-satelliti beta li jikkodifikaw il-proteina C1 relatata mal-virulenza. A-rich huwa reġjun kkonservat b'ħafna adenina tas-satelliti tad-DNA, u SCR huwa r-reġjun ikkonservat bis-satellita. Bħal C1, il-prodotti kodifikati ta 'ORFs V1, V2, BV1, C2, C4, u AC3 minn xi speċi ta' geminivirus huma rrappurtati wkoll bħala fatturi ta 'virulenza. Adattat minn [19].
3. Geminiviruses Attiva u Jrażżan Rispons Viral PTI u ETI Like
Għalkemm il-viruses huma parassiti intraċellulari, studji reċenti wrew li l-infezzjoni tal-virus tista 'tattiva risponsi bħal PTI fl-ospitanti [7,20]. Madankollu, PAMPs virali u PRRs konnessi tagħhom ma ġewx iżolati u kkaratterizzati, u għalhekk, il-mekkaniżmu tal-attivazzjoni tal-PTI b'reazzjoni għal infezzjoni virali għadu mhux magħruf. Għarfien frammentat dwar PTI virali jinkludi l-osservazzjoni li RNA minn pjanti infettati u double-stranded (ds) RNA [poly(I: C)] intwera li jqanqlu risponsi tipiċi tal-PTI b'mod dipendenti fuq ir-riċettur tal-embrijoġenesi somatiku kinase 1 (SERK1) [21,22]. SERK1 jappartjeni għas-sottofamilja II tal-kinażi li jixbħu r-riċetturi (RLK) transmembrane leucine-rich repeat (LRR) li jinkludu diversi coreceptors karatterizzati ta 'PRRs [6,23]. DsRNA virali jista 'jitqies bħala PAMPs potenzjali peress li ġeneralment jiġi ġġenerat f'pjanti infettati minn viruses RNA u DNA [7,21].
Madankollu, il-PRRs jirrikonoxxu PAMPs mhux virali extraċellulari, u bħala parassiti obbligati intraċellulari, mhuwiex ċert jekk il-PRRs tal-pjanti jipperċepixxux il-viruses permezz tad-dominju extraċellulari tagħhom li jħoss PAMP.
Li jixbah l-attivazzjoni SERK1 medjata mid-dsRNA, NIK1, membru ieħor LRR-RLK tas-sottofamilja II ta 'coreceptors, jista' jiġi attivat minn aċidi nukleiċi derivati minn begomovirus [7]. Madankollu, l-attivazzjoni ta 'NIK1 indotta minn PAMPs virali pprovduti b'mod esoġenu teħtieġ weraq imweġġa' mekkanikament biex tiffaċilita d-dħul ta 'aċidi nukleiċi derivati minn begomovirus f'ċelloli tal-weraq Arabidopsis thaliana mhux infettati. Dawn ir-riżultati jissuġġerixxu li l-PRRs iħossu PAMPs virali intraċellulari, li jkun jeħtieġ jew internalizzazzjoni endoċitika tad-dominju extraċellulari sensing PRR jew perċezzjoni permezz tad-dominju ċitosoliku PRR kinase.
Fiċ-ċelloli tal-mammiferi, il-perċezzjoni ta 'aċidi nukleiċi derivati mill-virus (DNA, ssRNA, u dsRNA) isseħħ intraċellulari mid-dominju LRR ta' riċetturi endosomal toll-like (TLRs) jew mid-dominju tas-sensorju tal-kinase ta 'riċetturi ċitosoliċi [24,25]. Eżempju ta 'dominju tal-kinase mammiferu li jħoss id-dsRNA jinkludi l-proteina kinase RNA-activated (PKR), li fosforila eIF2 alpha biex jagħlaq it-traduzzjoni bi tweġiba għall-infezzjoni tal-virus [25]. Id-dimostrazzjoni reċenti li dsRNAs jinduċu fosforilazzjoni ta 'eIF2 alpha f'Arabidopsis tista' tissuġġerixxi mekkaniżmu simili għall-attivazzjoni tad-dominju tas-sensorju tal-kinase medjat minn PAMP virali fiċ-ċelloli tal-pjanti [26].
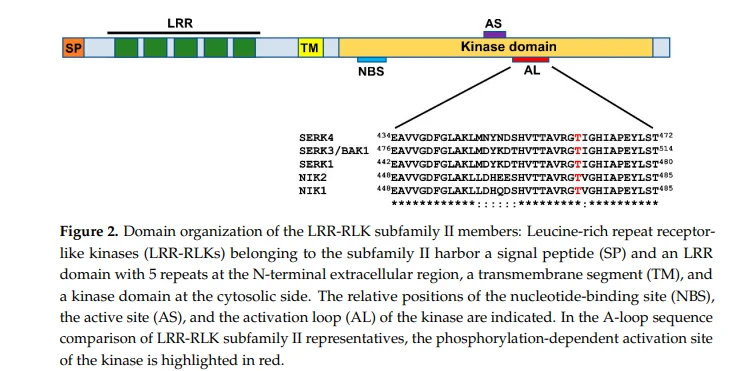
Minbarra SERK1, meħtieġ għall-attivazzjoni tal-PTI virali, is-sottofamilja II ta 'LRR-RLKs tinkludi membri li jiffunzjonaw bħala coreceptors għal kumplessi multipli ta' RLKs involuti fid-difiża [6,23]. Il-konfigurazzjoni tar-riċettur tal-membri tas-sottofamilja LRR-RLK II tinkludi dominju extraċellulari N-terminal li jospita erba' LRR kompluti u l-ħames LRR mhux komplut, segment transmembrana b'pass wieħed, u dominju serine/threonine kinase konservat fin-naħa ċitosolika. 27,28] (Figura 2).
Fost il-membri tal-clade LRRII-RLK, brassinosteroid insensitive 1 (BRI1)-assoċjat kinase 1 (BAK1), innominat ukoll SERK3, jirrappreżenta l-coreceptor l-aħjar karatterizzat li jifforma kumplessi b'PRRs multipli, li jgħaqqad kumplessi immuni attivi biex jinbeda PTI mhux virali u virali [6,29]. Eżempji ta' PRRs għal korreċettur BAK1 jinkludu r-riċettur tal-flagellin flagellin sensing 2 (FLS2), riċettur ta' elongation factor-thermo instable (EF-Tu) (EFR), jew PEP1 riċettur 1 (PEPR1), li jipperċepixxu PAMPs/DAMPs speċifiċi u jqanqlu PTI ( riveduta fi [6]). Membri addizzjonali tas-sottofamilja LRRII-RLK, SERK4/BKK1 (BAK1-bħal kinase 1) u NIK1 intwerew ukoll li jiffunzjonaw fl-immunità antivirali [30,31].
Għalkemm il-PRRs li jħossu l-aċidu nuklejku għad iridu jiġu identifikati fil-pjanti, l-infezzjoni tal-virus tinduċi diversi avvenimenti immuni tal-markatur tal-PTI, li jindika li PTI virali jista 'jopera f'impjanti b'mekkaniżmi simili bħal PTI mhux virali [7,21,32]. Barra minn hekk, il-preattivazzjoni tal-PTI b'PAMPs mhux virali żżid ir-reżistenza kontra l-viruses, u l-inibituri tal-PTI itejbu s-suxxettibilità għall-infezzjoni tal-virus [33,34]. Studji tal-ġenetika inversa mmirati lejn komponenti upstream tal-PTI ikkonfermaw ukoll li l-pjanti jużaw il-PTI biex jiġġieldu l-infezzjoni tal-virus. L-inattivazzjoni tal-coreceptors PTI BAK1, SERK1, u SERK4/BKK1 intweriet li ttejjeb is-suxxettibilità għall-infezzjoni tal-virus RNA [8,22,29,31]. Preċedenti fil-letteratura jindikaw li l-infezzjoni tal-geminivirus jattiva u irażżan il-PTI (Figura 3). Rep minn geminiviruses differenti jinduċi ġeni markaturi assoċjati ma 'PTI u difiżi dipendenti fuq SA [35,36].
Meta koespressa mal-proteina C4 tal-virus tat-tadam yellow leaf curl (TYLCV), Rep tidderieġi mill-ġdid C4 lejn il-kloroplasti fejn jaġixxi bħala suppressor tal-PTI billi jnaqqas is-sinjali tad-difiża dipendenti fuq SA u ROS [20]. L-infezzjoni tal-Geminivirus tippromwovi t-traslokazzjoni C4 N-myristoylated marbuta mal-membrana tal-plażma għall-kloroplasti, fejn is-C4 mhux miristoylated jinteraġixxi mar-riċettur tal-kalċju tal-pjanti (CAS) u jfixkel il-bijosintesi SA u d-difiżi medjati [37]. Minbarra Rep u C4, il-proteina C1 tas-satellita beta tal-virus tat-tadam isfar tal-weraq tat-tadam (TYLCCV), meħtieġa għall-induzzjoni tas-sintomi, intweriet li tinterferixxi mar-risponsi simili PTI. C1 jaffettwa l-attivazzjoni MAPK indotta minn PTI u r-risponsi downstream billi jimmira MKK2 f'A. thaliana u Nicotiana benthamiana [38,39].
TYLCV C4 jinteraġixxi wkoll ma 'RLKs, inkluż FLS2, PRR tipiku attivat mill-flagellina PAMP batterjali, u NIK1, riċettur immuni antivirali li jista' jipproteġi l-pjanti kontra begomovirus [3,40]. L-interazzjoni C4 ma 'FLS2 intweriet li tinibixxi risponsi parzjalment simili għal PTI [40]. L-espressjoni ektopika C4 f'Arabidopsis inibbet il-fqigħ apoplastiku bikri ta 'ROS wara l-perċezzjoni flg22 iżda mhux l-espressjoni tal-ġeni tad-difiża tal-markatur PTI, u lanqas affettwat l-inibizzjoni tard tat-tkabbir medjata mill-attivazzjoni tal-PTI. Bl-istess mod, NSP intwera li jinteraġixxi mal-koreċettur FLS2 BAK1 u għalhekk jista 'jfixkel ir-risponsi immuni mal-perċezzjoni tal-patoġenu, b'mod simili għall-inibizzjoni NIK1 mill-NSP kodifikat b'begomovirus [23,41]. Madankollu, l-interazzjoni NSP-BAK1 intweriet biss mis-sistema ta 'żewġ ibridi tal-ħmira; għalhekk, aktar studji huma meħtieġa biex tiġi assenjata funzjoni li jrażżan il-PTI lill-NSP.
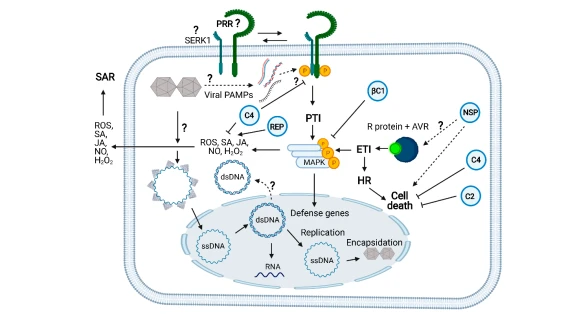
Figura 3. Immunità intrinsika medjata mir-riċetturi kontra geminiviruses u attivitajiet virali kontra difensivi: Bħal kull virus ieħor tal-pjanti, geminiviruses huma parassiti intraċellulari obbligati kkonsenjati fiċ-ċitoplasma taċ-ċelloli tal-pjanti mill-vettur tal-insetti. L-ispakkjar tal-partiċelli virali x'aktarx li jseħħ fiċ-ċitoplasma.
Imbagħad, ssDNA virali (v) marbut ma 'CP huwa dirett lejn in-nukleu fejn v-ssDNA jiġi kkonvertit għal v-dsDNA biex jirreplika l-ġenoma virali permezz tal-mekkaniżmu taċ-ċirku rolling u għat-traskrizzjoni tal-ġeni virali. L-infezzjoni tal-geminivirus kemm tinduċi kif ukoll trażżan l-immunità intrinsika tal-pjanta. L-aċidi nukleiċi derivati minn Geminivirus jistgħu jaġixxu bħala PAMP virali biex jinduċu d-dimerizzazzjoni ta 'PRR li għad irid jiġi identifikat bil-coreceptor SERK1 tiegħu biex tibda l-mogħdija tas-sinjalar tal-PTI. SERK1 huwa meħtieġ għal PTI virali suscitat minn dsRNA, iżda ma teżisti l-ebda evidenza diretta għall-parteċipazzjoni tagħha fil-PTI geminivirali. FLS2 jista' jaħdem bħala PRR ġeminivirali minħabba li C4 jaġixxi bħala effettur tal-virulenza billi jorbot ma' FLS2 u jinibixxi r-risponsi bikrija tal-PTI. Bl-istess mod, il-beta satellite C1 virulence effector jaffettwa l-kaskata MAPKinase. F'ġenotip Phaseolus vulgaris reżistenti għall-bean dwarf mosaic virus (BDMV), NSP jaġixxi bħala fattur ta 'avirulence; huwa rikonoxxut minn riċettur intraċellulari mhux magħruf u jattiva HR, mewt taċ-ċelluli, u risponsi bħal ETI.
Riċettur NLR intraċellulari tipiku ta 'ETI (TYNBS1) jagħti reżistenza għal TYLCV, iżda l-fattur ta' avirulenza tal-geminivirus konness mhuwiex magħruf. Rep intwera li jinduċi difiżi medjati minn ROS u SA. Bħala effetturi tal-virulenza, C4 u C2 jikkumbattu l-attivazzjoni tal-ETI billi jrażżnu l-HR u l-mewt taċ-ċelluli. C4 jinibixxi wkoll id-difiżi medjati minn SA. Il-marki tal-mistoqsija jindikaw jew avvenimenti mhux iċċarati sew jew mhux magħrufa. Il-vleġeġ tal-linja solida jiddeskrivu avvenimenti murija b'mod sperimentali u l-vleġeġ tal-linja bit-tikek jindikaw avvenimenti implikati ġenetikament. Ara l-Figura 1 għad-denominazzjonijiet tal-proteini virali. Iċ-ċifra nħolqot b'BioRender 101 (BioRender.com; https://biorender.com/, aċċessat fl-1 ta' April 2021).
It-tieni saff ta 'immunità intrinsika tal-pjanti, ETI, jirrappreżenta linja aktar speċifika u robusta ta' difiża ospitanti, li, b'kuntrast mal-PTI, ħafna drabi tirriżulta f'mewt taċ-ċelluli programmata, ir-rispons ipersensittiv (HR), biex jirrestrinġi l-patoġenu għas-sit ta ' infezzjoni [42]. L-ETI tiddependi fuq riċetturi immuni intraċellulari (reżistenza, R, proteini), li jirrikonoxxu, direttament jew indirettament, effetturi avirulenti ta' patoġenu speċifikament ħafna biex jattivaw risponsi immuni (11,14,20).Il-proteini antivirali intraċellulari R huma l-aktar rappreżentati min-nukleotide li jorbtu riċetturi ripetuti b'ħafna lewċina (NLR) [14,43,44] Il-locus naturali tar-reżistenza Ty-2 għal TYLCV jikkodifika proteina NB-LRR, imsejħa TYNBS1, li tista' tattiva l-ETI permezz ta' rikonoxximent ta' proteina li għad trid -be-identified geminiviral effector [45].
Eżempji ta’ proteini ta’ reżistenza mhux NB-LRR kontra TYLCV jinkludu l-proteini tas-sensorju Ty-1 u Ty-3, li jikkodifikaw RNA polymerase dipendenti fuq l-RNA (RDR) [46], u l-ġene ta’ reżistenza reċessiv ikkodifikat mill-locus Ty-5, il-fattur ta' sorveljanza tal-RNA tal-messaġġier Pelota [47,48]. Madankollu, ir-reżistenza bbażata fuq Ty-1-kontra TYLCV hija disakkoppjata ma' ETI u tinvolvi sajlenser tal-ġeni tat-traskrizzjoni mtejjeb [49], u l-mekkaniżmu sottostanti li jimmedja r-reżistenza Pelota kontra geminiviruses mhuwiex magħruf.
Evidenza ulterjuri li l-geminiviruses jattivaw l-ETI hija derivata minn studji ta 'indutturi u s-soppressori ta' geminiviruses ta' risponsi bħal HR u ETI (Figura 3). L-infezzjoni tal-Geminivirus tinduċi rispons ipersensittiv (HR) u ġeni relatati mas-senescence mingħajr ma tiżviluppa fenotip viżibbli tal-mewt taċ-ċelluli [50]. B'mod aktar speċifiku, il-proteini geminivirus Rep, NSP, u V2 intwerew li jinduċu HR [51-53].
B'kuntrast, xi proteini ġeminivirali għandhom il-kapaċità li jrażżnu l-mewt taċ-ċelluli bħal HR [19]. Il-proteina C2 minn papaya leaf curl virus (PaLCuV) u cotton leaf curl Kokhran virus (CLCuKoV) intwera li jinibixxi V2-HR medjat [53]. Bl-istess mod, l-infezzjoni TYLCV ittaffi l-mewt taċ-ċelluli fil-pjanti tat-tadam, indotta mill-inattivazzjoni tal-proteina ta 'xokk tas-sħana 90 (HSP90) u s-soppressor tal-allele G2 ta' Skp1 (SGT1) [54].
Xorta waħda, il-mekkaniżmu tat-trażżin tal-mewt taċ-ċelluli medjat minn TYLCV mhuwiex magħruf. B'kuntrast, il-mekkaniżmu sottostanti għall-attività li jrażżan il-mewt taċ-ċelluli ta 'C4 mill-virus Yunnan curl tal-weraq tat-tadam (TLCYnV) ġie skopert reċentement [55]. C4 jinteraġixxi ma' HIR1, ifixkel l-oligomerizzazzjoni awto HIR1, u jippromwovi d-degradazzjoni tiegħu, u b'hekk jinibixxi l-HR1-medjat minn HIR u jżid il-patoġeniċità tal-virus. Għalkemm diversi linji ta 'evidenza jindikaw li kemm il-begomoviruses monopartiti kif ukoll dawk bipartiti jinduċu u jrażżnu l-HR, il-mekkaniżmi ta' attivazzjoni u trażżin tal-ETI minn geminiviruses għadhom 'il bogħod milli jinftiehmu.

4. NIK1-Sinjali Antivirali medjati u Crosstalk b'Immunità Antibatterika
NIK1 ġie identifikat l-ewwel fit-tadam bħala mira ta 'virulenza ta' NSP mill-virus tal-mużajk tad-deheb tat-tadam (TGMV). Huwa jittrasduċi sinjal antivirali li jilħaq il-qofol tiegħu fis-soppressjoni tat-traduzzjoni globali tal-host [16,18]. L-interazzjoni ta' NIK1 ma' NSP hija kkonservata fost NIKs minn ospiti differenti, bħal Arabidopsis, soybean, u tadam, u NSPs minn begomoviruses distinti, inkluż cabbage leaf curl virus (CabLCV), TGMV, tomato crinkle yellow leaf virus (TCrYLV), u tomato yellow. spot virus (ToYSV) [30,56]. Riċentement, NIK2 minn Arabidopsis intwera li jiffunzjona bħala paralog NIK1 fil-mogħdija ta 'sinjalazzjoni antivirali [7,27].
Għalkemm is-sinjalar antivirali medjat minn NIK1-tqies bħala paradigma ġdida għall-immunità antivirali tal-pjanti, juri bosta karatteristiċi PTI [57]. L-ewwel, NIK1 huwa strutturalment relatat mal-koreċetturi PTI tipiċi BAK1, SERK4, u SERK1, li juru dominju kinase kkonservat ħafna u konfigurazzjoni simili tad-dominju extraċellulari LRR [27] (Figura 2).
It-tieni, l-attivazzjoni ta 'NIK1 teħtieġ fosforilazzjoni fi threonine-474, pożizzjoni kkonservata fost is-siti ta' attivazzjoni ta 'BAK1, SERK4, u SERK1, li tista' tindika mekkaniżmu simili għall-attivazzjoni tal-kinase [58]. It-tielet, NIK1 huwa attivat minn aċidi nuklejċi derivati minn begomovirus, li jixbħu l-mekkaniżmu ta 'attivazzjoni PTI minn PAMPs virali [7,22]. Fl-aħħarnett, is-sinjalar antivirali medjat NIK1- huwa inibit minn NSP kodifikat b'begomovirus, li jissodisfa l-premessa li l-attivazzjoni b'suċċess tal-ETI tkun tiddependi fuq is-soppressjoni tal-PTI minn effetturi virali [7,11]. Eżempji ta' sustanzi li jrażżnu PTI minn viruses oħra tal-pjanti jinkludu CP mill-virus tal-ġidri tal-għanbaqar (PPV), il-ġeneru Potyvirus [8], P6 mill-virus tal-mużajk tal-pastard (CaMV), il-ġeneru Caulimovirus [59], u MP mill-virus tal-mużajk tal-ħjar (CMV), Cucumovirus ġeneru [9]. Għalhekk, bħall-PTI virali klassika, is-sinjalar antivirali medjat minn NIK1-jiġi attivat u mrażżan mill-infezzjoni tal-begomovirus.
Minkejja x-xebh bejn is-sinjalar PTI u NIK1, l-avvenimenti downstream tal-attivazzjoni tar-riċettur/koreċettur u l-assemblaġġ ta 'rispons tad-difiża jvarjaw b'mod konsiderevoli. Tipikament, l-attivazzjoni tal-PTI tirriżulta f'akkumulazzjoni ta 'ROS bħala rispons bikri, segwita minn attivazzjoni ta' MAP Kinases, induzzjoni ta 'ġeni ta' difiża assoċjati ma 'PTI, sintesi ta' ethylene u aċidu saliċiliku, u depożizzjoni ta 'callose [5]. B'differenza mir-risponsi immuni PTI, NIK1-medjazzjoni tas-sinjalar antivirali tirriżulta fit-trażżin tat-traduzzjoni globali tal-ospitanti (Figura 4) [60].
Skont il-mudell mekkanistiku għall-attivazzjoni NIK1, waqt l-infezzjoni, l-aċidi nuklejċi derivati minn begomovirus jiffunzjonaw bħala PAMPs virali li jinduċu dimerizzazzjoni NIK1 miegħu nnifsu, NIK2, jew riċettur mhux magħruf (Figura 4) [7,30]. Bħala membri tas-sottofamilja II ta 'LRRII-RLK b'konfigurazzjoni ta' ectodomain simili bħal coreceptors PTI, Arabidopsis NIK1 u l-paralog NIK2 tiegħu jistgħu jiffunzjonaw bħala coreceptors ta 'PRRs mhux magħrufa li jħossu l-aċidu nuklejku [6]. Formazzjoni ta' kumpless immuni attiv twassal għal fosforilazzjoni ta' NIK1 f'Thr-474, essenzjali għall-attivazzjoni ta' NIK1 kinase biex tibda s-sinjalar [41,58]. NIK1 attivat jimmedja l-fosforilazzjoni tal-proteina ribosomali komponent downstream (RP) L10, li min-naħa tagħha tippromwovi t-traslokazzjoni tagħha għan-nukleu [61,62]. NIK1 jista' jikkontrolla l-estent tal-fosforilazzjoni RPL10 permezz ta' awtofosforilazzjoni sekwenzjali fir-residwu Thr-469 funzjonalment antagonistiku [41].
Fin-nukleu, l-RPL10 fosforilati jinteraġixxi mar-ripressatur traskrizzjoni L10-interazzjoni tal-proteina li fiha d-dominju Myb (LIMYB) biex trażżan bis-sħiħ l-espressjoni tal-ġeni relatati mal-makkinarju tat-traduzzjoni, li jikkawża soppressjoni tas-sintesi globali tal-proteini [18]. L-mRNAs virali ma jistgħux jaħarbu mis-soppressjoni translazzjonali tal-host; ma jiġux tradotti b'mod effiċjenti, u jikkompromettu l-infezzjoni [16,18]. Jikkontrobattu l-mekkaniżmu ta 'attivazzjoni tal-mogħdija tad-difiża, NSP jinteraġixxi mad-dominju kinase biex jipprevjeni l-fosforilazzjoni u l-attivazzjoni ta' NIK1, u joħloq ambjent li huwa aktar favorevoli għall-infezzjoni ta 'begomovirus [30,41,61]. Għalhekk, is-sinjalar antivirali medjat minn NIK1-huwa difiża tal-ospiti mrażżna b'mod evoluttiv minn begomoviruses.

Figura 4. Sinjali antivirali medjati minn NIK1-u crosstalk b'immunità antibatterika: F'ċelluli mhux infettati, (1) pools NIK1 huma marbuta mal-PRR FLS2 u l-coreceptor PTI BAK1 biex jipprevjenu l-awtoimmunità. (2) Fil-bidu tal-infezzjoni, ssDNA marbut ma 'CP jiġi ttrasportat lejn in-nukleu għar-replikazzjoni tal-ġenoma virali u t-traskrizzjoni tal-ġeni virali. (3)
Fiċ-ċelloli infettati, l-aċidi nuklejċi derivati minn geminivirus jaġixxu bħala PAMPs virali u jinduċu d-dimerizzazzjoni ta 'NIK1 miegħu nnifsu jew ma' riċettur ieħor mhux magħruf (bħal PRR) għal transfosforilazzjoni tad-dominji intraċellulari tal-kinase. Il-fosforilazzjoni ta' NIK1 f'Thr-474 jattiva l-kinase li mbagħad timmedja l-fosforilazzjoni RPL10. (4) L-RPL10 fosforilat huwa ridirett lejn in-nukleu, fejn jinteraġixxi ma 'LIMYB biex jirreprimi l-espressjoni ta' proteini ribosomali (RBs) u ġeni relatati mal-makkinarju tat-traduzzjoni, li jwassal biex jissopprimi t-traduzzjoni tal-mRNA ospitanti u virali. (5) NSP jiġġieled l-attivazzjoni ta 'dan il-mekkaniżmu antivirali billi jorbot mad-dominju tal-kinase NIK1, u b'hekk jipprevjeni l-fosforilazzjoni u l-attivazzjoni ta' NIK1. (6) Infezzjoni batterika (Pseudomonas spp) tipprovdi l-flagellina PAMP batterika apoplastika (flg22), li hija rikonoxxuta minn PRR FLS2, u b'hekk tinduċi l-formazzjoni tal-kumpless immuni attiv FLS2-BAK1 biex jibda PTI. FLS2-BAK1-marbut NIK1 imbagħad jiġi fosforilat f'Thr-474 mill-BAK1 attivat, (7) isaħħaħ is-soppressjoni NIK1 tal-PTI iżda (8) jattiva n-NIK1-medjat sinjalazzjoni antivirali li tirriżulta fit-trażżin tat-traduzzjoni globali. (9) C4 minn geminiviruses jorbot ma 'FLS2 u jinibixxi r-risponsi bikrija tal-PTI u l-attivazzjoni sussegwenti ta' NIK1 u joħloq ambjent li jiffavorixxi l-infezzjoni tal-virus. Il-marki tal-mistoqsija jindikaw jew avvenimenti mhux iċċarati sew jew mhux magħrufa. Iċ-ċifra nħolqot b'BioRender 101.
L-immunità medjata NIK1-tikkomunika ma' PTI minħabba li NIK1 u NIK2 jiffunzjonaw ukoll bħala soppressori tal-PTI (Figura 4) [17]. L-inattivazzjoni ta 'jew NIK1 jew NIK2 f'Arabidopsis ittejjeb l-attivazzjoni tal-PTI u tagħti reżistenza għal Pseudomonas syringae, fenotip oppost muri minn linji li jesprimu żejjed NIK. F'kundizzjonijiet normali, NIK1 jinteraġixxi mar-riċettur tal-flagellin FLS2 u l-coreceptor BAK1 tiegħu biex jinterferixxi mal-formazzjoni tal-kumpless immuni u jipprevjeni l-awtoimmunità (Figura 4).
Il-PAMP flagellin batterjali, jew il-peptide attiv tiegħu flg22, jinteraġixxi ma 'FLS2 u jinduċi dimerizzazzjoni ma' BAK1, li jwassal għall-formazzjoni ta 'kumpless immuni attiv biex jibda s-sinjalar PTI. FLS2-attivazzjoni medjata ta' BAK1 tippromwovi l-fosforilazzjoni ta' NIK1 fis-sit ta' attivazzjoni Thr-474, li tistimula aktar l-interazzjoni NIK1 ma' FLS2 u BAK1 biex tikkontrolla l-firxa tal-attivazzjoni tal-PTI u mbagħad tiskatta l-attivazzjoni tan-NIK 1-sinjalazzjoni antivirali medjata. Flg22-fosforilazzjoni NIK1 indotta teħtieġ kemm PRR FLS2 kif ukoll il-coreceptor BAK1 tiegħu, li jindika li NIK1 jaġixxi 'l isfel mis-sinjalar tar-riċettur. Dawn ir-riżultati jissostanzjaw l-argument li NIK1 jista' jiffunzjona bħala korreċettur fl-attivazzjoni kkaġunata minn ligand ta' riċettur li jħoss l-aċidu nukleiku (PRR) li għadu mhux magħruf biex iqajjem id-difiża antivirali medjata minn NIK1-. Jissuġġerixxu wkoll li PAMP batterjali jista 'jattiva r-reżistenza tal-begomovirus permezz tal-fosforilazzjoni NIK1, li tista' ttaffi l-inibizzjoni tal-NSP. Diversi linji ta 'evidenza jindikaw li l-attivazzjoni medjata mill-fosforilazzjoni ta' NIK1 hija 'l isfel mill-inibizzjoni ta' NIK1 minn NSP kodifikat b'begomovirus.
L-ewwel, is-sit li jgħaqqad l-NSP fuq il-mapep NIK1 fi ħdan medda ta '80 aċidu amminiku li jikkoinċidu mal-linja ta' attivazzjoni u s-sit ta 'attivazzjoni tal-kinase (Thr474) [30]. It-tieni, is-sostituzzjoni tas-sit ta' attivazzjoni Thr-474 b'aspartate toħloq mutant fosfomimetiku li m'għadux inibit minn NSP [41]. Fl-aħħarnett, espressjoni żejda tal-mutant fosfomimetiku NIK1-T474D f'Arabidopsis u pjanti tat-tadam jagħtu reżistenza fuq firxa wiesgħa għall-infezzjoni tal-begomovirus [16,18]. Għalhekk, it-trattament tal-ospiti bil-batterja PAMP flg22 qabel l-infezzjoni tal-begomovirus jista' jwassal għal rispons immuni antivirali medjat minn NIK1-effiċjenti billi jinjora l-inibizzjoni tal-NSP. Din l-interazzjoni bejn ir-risponsi immuni tippermetti li l-batterji jattivaw l-immunità kontra l-viruses, u għalhekk jipprevjenu infezzjonijiet multipli minn patoġeni minn renji differenti preżumibbilment biex tiġi evitata l-kompetizzjoni.

5. Konklużjonijiet
Studji reċenti wrew li l-pjanti jużaw iż-żewġ livelli tal-immunità intrinsika klassika, PTI u ETI, biex jiġġieldu l-infezzjoni tal-virus, u geminiviruses mhumiex eċċezzjoni. Madankollu, l-evidenza għal PTI u ETI geminivirali tiddependi fuq l-osservazzjonijiet li l-infezzjoni ta 'geminivirus tista' tinduċi u trażżan risponsi bħal PTI u ETI. Barra minn hekk, xi proteini geminivirali jiffunzjonaw bħala soppressori tal-PTI, u mill-inqas ġene ta 'reżistenza iżolat wieħed għal TYLCV juri l-konfigurazzjoni klassika NL-LRR ta' proteini R intraċellulari li jqanqal ETI. Madankollu, l-għarfien tagħna dwar il-mekkaniżmi geminivirali PTI u ETI għadu rudimentali, u bosta passi fl-attivazzjoni u r-rispons tal-PTI u ETI mhumiex magħrufa. Pereżempju, ma nafux l-identità tal-PAMPs geminivirali li jinduċu PTI, u l-PRRs konnessi ma ġewx identifikati.
Barra minn hekk, ir-repertorju ta 'soppressori geminivirali PTI huwa ristrett għal C4 u forsi għal C1 u NSP. Intwera li s-sinjalar antivirali mrażżan mill-NSP1-medjat minn NIK{3}}jikkomunika ma' PTI batterjali. Minbarra li trażżan it-traduzzjoni globali tal-ospitanti, l-attivazzjoni ta' NIK1 twassal għal soppressjoni ta' PTI batterjali, li tirrestrinġi saħansitra aktar l-użu ta' sinjalar antivirali sostnut medjat minn NIK1- biex jikkontrolla l-infezzjoni tal-virus. L-iżolament ta 'PAMPs geminivirali u PRRs konnessi, effetturi geminivirali (ġeni Avr), u miri ospitanti NL-LRR se jgħinu biex jiċċaraw il-mekkaniżmu ta' attivazzjoni ETI u soppressjoni PTI bħala l-pedament għall-fehim tad-dinamika tal-pressjoni evoluzzjonarja li taġixxi fuq l-interazzjonijiet ta 'geminivirus u host. Dan il-fehim fl-aħħar mill-aħħar se jgħin biex jiġi determinat kif tintuża s-sistema immuni biex tikkontrolla l-infezzjoni tal-geminivirus.
Kontribuzzjonijiet tal-Awtur:
MAF u RMT kitbu l-ewwel abbozz tal-manuskritt. L-EPBF ikkonċepita u ssorvelja s-suġġetti tar-reviżjoni. L-awturi kollha kkontribwew għall-artiklu. L-awturi kollha qraw u qablu mal-verżjoni ppubblikata tal-manuskritt.

Finanzjament:
Dan ix-xogħol kien parzjalment iffinanzjat mill-kodiċi tal-finanzi CAPES 001, CNPq, FAPEMIG, u l-Istitut Nazzjonali tax-Xjenza u t-Teknoloġija fl-interazzjonijiet tal-Pjanti-Pest. MA hija riċevitur ta 'fellowship ta' gradwati CAPES u RMT hija appoġġjata minn fellowship ta 'gradwati FAPMIG.
Kunflitti ta' Interess:
L-awturi ma jiddikjaraw l-ebda kunflitt ta' interess.
Referenzi
1. Dangl, JL; Horvath, DM; Staskawicz, BJ Jidawwar is-Sistema Immune tal-Pjanti mid-Dissezzjoni sa l-Iskjerament. Xjenza 2013, 341, 746–751. [CrossRef]
2. Zhou, J.-M.; Zhang, Y. Immunità tal-Pjanti: Perċezzjoni tal-Periklu u Sinjali. Ċellula 2020, 181, 978–989. [CrossRef] [PubMed]
3. Macho, AP; Lozano-Duran, R. Djalogi molekulari bejn viruses u kinases bħal riċetturi fil-pjanti. Mol. Pathol tal-Pjanti. 2019, 20, 1191–1195. [CrossRef]
4. Zipfel, C. Riċetturi għar-rikonoxximent tal-mudelli tal-pjanti. Xejriet Immunol. 2014, 35, 345–351. [CrossRef]
5. Bigeard, J.; Colcombet, J.; Hirt, H. Mekkaniżmi ta' Sinjali f'Immunità Triggered Pattern (PTI). Mol. Impjant 2015, 8, 521–539. [CrossRef]
6. Ma, X.; Xu, G.; Hu, P.; Shan, L. SERKing Coreceptors għal Riċetturi. Xejriet tal-Pjanti Sci. 2016, 21, 1017–1033. [CrossRef] [PubMed]
7. Teixeira, RM; Ferreira, MA; Raimundo, GASS; Loriato, VAP; Reis, PAB; Fontes, EPB Perċezzjoni tal-virus fil-wiċċ taċ-ċellula: Rieżami tar-rwoli ta 'kinases bħal riċetturi bħala riċetturi ta' rikonoxximent tal-mudell virali. Mol. Pathol tal-Pjanti. 2019, 20, 1196–1202. [CrossRef]
8. Nicaise, V.; Candresse, T. Il-proteina tal-kapsid tal-virus tal-ġidri tal-għanbaqar irażżan l-immunità attivata mill-mudell molekulari assoċjat mal-patoġen tal-pjanti (PAMP). Mol. Pathol tal-Pjanti. 2017, 18, 878–886. [CrossRef]
9. Kong, J.; Wei, M.; Li, G.; Lei, R.; Qiu, Y.; Wang, C.; Li, Z.-H.; Zhu, S. Il-proteina tal-moviment tal-virus tal-mużajk tal-ħjar irażżan ir-risponsi immuni PAMPtriggered fl-Arabidopsis u t-tabakk. Biochem. Biophys. Res. Komun. 2018, 498, 395–401. [CrossRef] [PubMed]
10. Wang, Y.; Wang, Y. Trick or Treat: Patoġeni Mikrobiċi Evolvew Effetturi Apoplastiċi li Modulaw is-Suxxettibilità tal-Pjanti għall-Infezzjoni. Mol. Interazzjoni tal-Mikrobi tal-Pjanti. 2018, 31, 6–12. [CrossRef]
11. Jones, JDG; Dangl, JL Is-sistema immunitarja tal-pjanti. Nat. Cell Biol. 2006, 444, 323–329. [CrossRef]
12. Dodds, PN; Rathjen, JP Immunità tal-pjanti: Lejn ħarsa integrata tal-interazzjonijiet tal-pjanti-patoġeni. Nat. Dun Genet. 2010, 11, 539–548. [CrossRef] [PubMed]
13. Macho, AP; Zipfel, C. Immirar ta 'immunità attivata mir-riċettur tar-rikonoxximent tal-mudell tal-pjanti minn effetturi tas-sistema ta' sekrezzjoni batterjali tat-tip III. Curr. Opinja. Microbiol. 2015, 23, 14–22. [CrossRef] [PubMed]
14. Gouveia, QK; Calil, IP; Machado, JPB; Santos, AA; Fontes, Riċetturi Immune EPB u Ko-riċetturi fl-Immunità Innata Antivirali fil-Pjanti. Quddiem. Microbiol. 2017, 7, 2139. [CrossRef]
15. Martins, LGC; Raimundo, GASS; Ribeiro, NGA; Silva, JCF; Euclydes, NC; Loriato, VAP; Duarte, CEM; Fontes, EPB A Begomovirus Nuclear Shuttle Protein-Interacting Immune Hub: Ħtif ta' Attivitajiet ta' Trasport Ospitanti u Trażżin ta' Funzjonijiet Inkompatibbli. Quddiem. Pjanti Sci. 2020, 11, 398. [CrossRef] [PubMed]
16. Brustolini, ĠU; Machado, JPB; Condori-Apfata, JA; Coco, D.; Deguchi, M.; Loriato, VA; Pereira, WA; Alfenas-Zerbini, P.; Zerbini, FM; Inoue-Nagata, AK; et al. Is-sinjalar antivirali sostnut medjat minn NIK jagħti tolleranza ta 'spettru wiesa' għal begomoviruses f'pjanti kkultivati. Bijoteknoloġija tal-Pjanti. J. 2015, 13, 1300–1311. [CrossRef]
17. Li, B.; Ferreira, MA; Huang, M.; Camargos, LF; Yu, X.; Teixeira, RM; Carpinetti, PA; Mendes, GC; Gouveia-Mageste, BC; Liu, C.; et al. Il-kinase bħal riċettur NIK1 jimmira għall-kumpless immuni FLS2/BAK1 u jimmodula b'mod invers l-immunità antivirali u antibatterika. Nat. Komun. 2019, 10, 1–14. [CrossRef]
18. Zorzatto, C.; Machado, JPB; Lopes, KVG; Nascimento, KJT; Pereira, WA; Brustolini, OJB; Reis, PAB; Calil, IP; Deguchi, M.; Sachetto-Martins, G.; et al. Is-soppressjoni tat-traduzzjoni medjata minn NIK1-taħdem bħala mekkaniżmu ta' immunità antivirali tal-pjanti. Nat. Cell Biol. 2015, 520, 679–682. [CrossRef]
19. Kumar, Immunità Antivirali tal-Pjanti RV Kontra Geminiviruses u Kontro-Difiża Viral għas-Sopravivenza. Quddiem. Microbiol. 2019, 10, 1460. [CrossRef]
20. Aguilar, E.; Gomez, BG; Lozano-Duran, R. Avvanzi riċenti fuq il-manipulazzjoni tal-pjanti minn geminiviruses. Curr. Opinja. Bijol tal-Pjanti. 2020, 56, 56–64. [CrossRef]
21. Amari, K.; Niehl, A. Immunità attivata minn PAMP medjata mill-aċidu nukleiku fil-pjanti. Curr. Opinja. Virol. 2020, 42, 32–39. [CrossRef]
22. Niehl, A.; Wyrsch, I.; Boller, T.; Heinlein, M. Double-stranded RNAs jinduċu mogħdija ta 'sinjalazzjoni immuni attivata minn mudell fil-pjanti. Phytol Ġdid. 2016, 211, 1008–1019. [CrossRef] [PubMed]
23. Sakamoto, T.; Deguchi, M.; Brustolini, OJB; Santos, A.; Silva, FF; Fontes, EPB Is-superfamilja tat-tadam RLK: Filoġenija u tbassir funzjonali dwar ir-rwol tas-sottofamilja LRRII-RLK fid-difiża antivirali. BMC Plant Biol. 2012, 12, 229. [CrossRef]
24. Botos, I.; Segal, DM; Davies, DR Il-Bijoloġija Strutturali tar-Riċetturi li jixbħu Toll. Struttura 2011, 19, 447–459. [CrossRef] [PubMed]
25. Wu, J.; Chen, ZJ Innate Immune Sensing, u Sinjali ta 'Aċidi Nukleiċi Ċitosoliċi. Annu. Dun Immunol. 2014, 32, 461–488. [CrossRef]
26. Niehl, A.; Heinlein, M. Perċezzjoni ta 'RNA double-stranded fl-immunità antivirali tal-pjanti. Mol. Pathol tal-Pjanti. 2019, 20, 1203–1210. [CrossRef] [PubMed]
27. Hosseini, S.; Schmidt, EDL; Bakker, FT Leucine-rich repetizzjoni riċettur simili kinase II phylogenics tiżvela ħames kladi ewlenin madwar ir-renju tal-pjanti. Plant J. 2020, 103, 547–560. [CrossRef]
28. Zhang, XS; Choi, JH; Heinz, J.; Chetty, Għażla Pożittiva Speċifika għad-Dominju CS tikkontribwixxi għall-Evoluzzjoni tal-Ġeni ta' Arabidopsis Leucine-Rich Ripeat Receptor Like Kinase (LRR RLK). J. Mol. Evol. 2006, 63, 612–621. [CrossRef]
29. Kørner, CJ; Klauser, D.; Niehl, A.; Domínguez-Ferreras, A.; Chinchilla, D.; Boller, T.; Heinlein, M.; Hann, DR Ir-Regolatur tal-Immunità BAK1 Jikkontribwixxi għar-Reżistenza Kontra Viruses RNA Diversi. Mol. Interazzjoni tal-Mikrobi tal-Pjanti. 2013, 26, 1271–1280. [CrossRef]
30. Fontes, EP; Santos, AA; Luz, DF; Waclawovsky, AJ; Chory, J. Il-proteina tax-shuttle nukleari tal-geminivirus hija fattur ta 'virulenza li jrażżan l-attività tar-riċettur transmembrane kinase. Ġeni Dev. 2004, 18, 2545–2556. [CrossRef] [PubMed]
31. Yang, H.; Gou, X.; Hu, K.; Xi, D.; Du, J.; Lin, H.; Li, J. BAK1 u BKK1 f'Arabidopsis thaliana jikkonferixxu suxxettibilità mnaqqsa għall-virus tat-tikmix tan-nevew. Eur. J. Pathol tal-Pjanti. 2010, 127, 149–156. [CrossRef]
32. Nicaise, V. Crop immunity against viruses: Outcomes and future challenges. Quddiem. Pjanti Sci. 2014, 5, 660. [CrossRef]
33. Iriti, M.; Varoni, attività antivirali indotta minn EM Chitosan u immunità innata fil-pjanti. Environ. Sci. Tniġġes. Res. 2014, 22, 2935–2944. [CrossRef] [PubMed]
34. Liu, J.-Z.; Horstman, HD; Braun, E.; Graham, MA; Zhang, C.; Navarre, D.; Qiu, W.-L.; Lee, Y.; Nettleton, D.; Għolja, JH; et al. Omologi tas-sojja ta 'MPK4 Jirregolaw b'mod negattiv it-tweġibiet tad-difiża u jirregolaw b'mod pożittiv it-tkabbir u l-iżvilupp. Physiol tal-Pjanti. 2011, 157, 1363–1378. [CrossRef] [PubMed]
35. Ding, X.; Jimenez-Gongora, T.; Krenz, B.; Lozano-Duran, R. Raggruppament tal-kloroplast madwar in-nukleu huwa rispons ġenerali għall-perċezzjoni tal-patoġenu f'Nicotiana benthamiana. Mol. Pathol tal-Pjanti. 2019, 20, 1298–1306. [CrossRef] [PubMed]
36. Wang, D.; Zhang, X.; Yao, X.; Zhang, P.; Fang, R.; Ye, J. A 7-Motif Amino-Acid tal-Proteina Rep Essenzjali għall-Virulenza Huwa Kritiku għat-Tħeġġiġ tad-Difiża Ospitanti Kontra l-Virus tal-Mużajk tal-Kassava tas-Sri Lanka. Mol. Interazzjoni tal-Mikrobi tal-Pjanti. 2020, 33, 78–86. [CrossRef]
37. Medina-Puche, L.; Tan, H.; Dogra, V.; Wu, M.; Rosas-Diaz, T.; Wang, L.; Ding, X.; Zhang, D.; Fu, X.; Kim, C.; et al. A Defense Pathway Linking Plasma Membrane and Chloroplasts u Co-opted mill-Patoġeni. Ċellula 2020, 182, 1109–1124.e25. [CrossRef]
38. Cui, X.; Tao, X.; Xie, Y.; Fauquet, CM; Zhou, X. A DNA Assoċjat ma 'Tadam Yellow Leaf Curl China Virus Huwa Meħtieġa għall-Induzzjoni Sintomi. J. Virol. 2004, 78, 13966–13974. [CrossRef]
39. Hu, T.; Huang, C.; Hu, Y.; Castillo-González, C.; Gui, X.; Wang, Y.; Zhang, X.; Zhou, proteina X. C1 kodifikata fis-satellita geminivirus jimmira b'mod konġunt MKK2 u MPK4 biex jiġġieled id-difiża tal-host. PLoS Pathog. 2019, 15, e1007728. [CrossRef] [PubMed]
40. Gómez, BG; Zhang, D.; Rosas-Díaz, T.; Wei, Y.; Macho, AP; Lozano-Durán, R. Il-proteina C4 mit-Tadam Yellow Leaf Curl Virus Jista 'B'mod Ġenerali Interazzjoni ma' Kinases bħal Riċetturi tal-Pjanti. Viruses 2019, 11, 1009. [CrossRef]
41. Santos, AA; Carvalho, CM; Florentino, LH; Ramos, HJO; Fontes, EPB Ikkonservat Residwi ta 'Treonina fi ħdan l-A-Loop tar-Riċettur NIK Irregola b'mod differenti l-Funzjoni Kinase Meħtieġa għal Sinjali Antivirali. PLoS ONE 2009, 4, e5781. [CrossRef]
42. Dalio, RJD; Paschoal, D.; Arena, GD; Magalhães, DM; Oliveira, TS; Merfa, MV; Maximo, HJ; Machado, MA Rispons ta 'sensittività eċċessiva: Minn rikonoxximent tal-patoġenu NLR għal rispons tal-mewt taċ-ċelluli. Ann. Appl. Biol. 2021, 178, 268–280. [CrossRef]
43. Ando, S.; Miyashita, S.; Takahashi, H. Sistemi ta 'difiża tal-pjanti kontra l-virus tal-mużajk tal-ħjar: Lezzjonijiet mitgħallma mill-interazzjonijiet CMV– Arabidopsis. J. Ġen. Plant Pathol. 2019, 85, 174–181. [CrossRef]
44. Calil, IP; Fontes, EPB Immunità tal-pjanti kontra viruses: Riċetturi immuni antivirali fil-fokus. Ann. Bot. 2016, 119, 711–723. [CrossRef] [PubMed]
45. Yamaguchi, H.; Ohnishi, J.; Saito, A.; Ohyama, A.; Nunome, T.; Miyatake, K.; Fukuoka, H. Ġene NB-LRR, TYNBS1, huwa responsabbli għar-reżistenza medjata mill-locus tar-reżistenza tat-tadam Ty-2 Begomovirus. Theor. Appl. Genet. 2018, 131, 1345–1362. [CrossRef]
46. Verlaan, MG; Hutton, SF; Ibrahem, RM; Kormelink, R.; Visser, RGF; Scott, JW; Edwards, JD; Bai, Y. Il-Ġeni tar-Reżistenza għall-Virus Curl tat-Tadam Yellow Leaf Ty-1 u Ty-3 Huma Alleliċi u Kodiċi għal Polimerażi RNA-RNA-Dipendenti tal-Klassi DFDGD. PLoS Genet. 2013, 9, e1003399. [CrossRef]
47. Lapidot, M.; Karniel, U.; Gelbart, D.; Fogel, D.; Evenor, D.; Kutsher, Y.; Makhbash, Z.; Nahon, S.; Shlomo, H.; Chen, L.; et al. Rotta ġdida li tikkontrolla r-reżistenza għall-begomovirus mill-Fattur ta' Sorveljanza tal-RNA Messenger Pelota. PLoS Genet. 2015, 11, e1005538. [CrossRef]
48. Wang, Y.; Jiang, J.; Zhao, L.; Zhou, R.; Yu, W.; Zhao, T. Applikazzjoni ta 'Resequencing Sħiħ tal-Ġenoma fl-Immappjar ta' Ġene tar-Reżistenza tal-Virus Curl Leaf Yellow tat-Tadam. Sci. Rep 2018, 8, 1–11. [CrossRef]
49. Butterbach, P.; Verlaan, MG; Dulemans, A.; Lohuis, D.; Visser, RGF; Bai, Y.; Kormelink, R. Tomato yellow leaf curl virus reżistenza minn Ty-1 tinvolvi żieda fil-metilazzjoni taċ-ċitosina tal-ġenomi virali u hija kompromessa minn infezzjoni tal-virus tal-mużajk tal-ħjar. Proc. Natl. Acad. Sci. USA 2014, 111, 12942–12947. [CrossRef] [PubMed] 50. Ascencio-Ib ´ñez, JT; Sozzani, R.; Lee, T.-J.; Chu, T.-M.; Wolfinger, RD; Cella, R.; Hanley-Bowdoin, L. Analiżi Globali tal-Espressjoni tal-Ġene ta 'Arabidopsis Tikxef Array Kumpless ta' Tibdil li Jaffettwaw ir-Rispons tal-Patoġenu u ċ-Ċiklu taċ-Ċelloli matul Infezzjoni Geminivirus. Physiol tal-Pjanti. 2008, 148, 436–454. [CrossRef]
51. Amin, I.; Patil, BL; Briddon, RW; Mansoor, S.; Fauquet, CM Tqabbil ta 'fenotipi prodotti b'reazzjoni għal espressjoni temporanja ta' ġeni kodifikati minn erba 'begomoviruses distinti f'Nicotiana benthamiana u l-korrelazzjoni tagħhom mal-livelli ta' miRNAs ta 'żvilupp. Virol. J. 2011, 8, 238. [CrossRef] [PubMed]
52. Garrido-Ramirez, ER; Sudarshana, MR; Lucas, WJ; Gilbertson, RL Bean dwarf mosaic virus BV1 Protein Huwa Determinant tar-Rispons Ipersensittivi u Avirulence f'Phaseolus vulgaris. Mol. Interazzjoni tal-Mikrobi tal-Pjanti. 2000, 13, 1184–1194. [CrossRef] [PubMed]
53. Mubin, M.; Amin, I.; Amrao, L.; Briddon, RW; Mansoor, S. Ir-rispons ipersensittiv indott mill-proteina V2 ta' begomovirus monopartite huwa miġġieled mill-proteina C2. Mol. Pathol tal-Pjanti. 2010, 11, 245–254. [CrossRef]
54. Moshe, A.; Gorovits, R.; Liu, Y.; Czosnek, H. Il-mewt taċ-ċelluli tal-pjanti tat-tadam indotta mill-inibizzjoni ta 'HSP90 tittaffa mill-infezzjoni tal-virus tat-tadam tal-weraq isfar curl. Mol. Pathol tal-Pjanti. 2015, 17, 247–260. [CrossRef] [PubMed]
55. Mei, Y.; Ma, Z.; Wang, Y.; Zhou, X. Geminivirus C4 jantagonizza r-rispons ipersensittiv medjat minn HIR1- billi jinibixxi l-interazzjoni awto HIR1 u jippromwovi d-degradazzjoni tal-proteina. Phytol Ġdid. 2019, 225, 1311–1326. [CrossRef] [PubMed]
56. Mariano, AC; Andrade, MO; Santos, AA; Carolino, SM; Oliveira, ML; Baracat-Pereira, MC; Brommonshenkel, SH; Fontes, EP Identifikazzjoni ta 'proteina kinase simili għal riċettur ġdid li jinteraġixxi ma' proteina shuttle nukleari ta 'geminivirus. Viroloġija 2004, 318, 24–31. [CrossRef]
57. Machado, JPB; Mendes, GC; Santos, AA; Brustolini, OJB; Fontes, EPB NIK1, fattur ospitanti speċjalizzat fid-difiża antivirali jew regolatur ġenerali ġdid tal-immunità tal-pjanti? BioEssays 2015, 37, 1236–1242. [CrossRef]
58. Santos, AA; Lopes, KVG; Apfata, JAC; Fontes, EPB NSP-interacting kinase, NIK: A transducer ta 'sinjalar difiża tal-pjanti. J. Exp. Bot. 2010, 61, 3839–3845. [CrossRef]
59. Zvereva, AS; Golyaev, V.; Turco, S.; Gubaeva, EG; Rajeswaran, R.; Schepetilnikov, MV; Srour, O.; Ryabova, LA; Boller, T.; Pooggin, MM Proteina virali irażżan il-fqigħ ossidattiv u l-awtofaġija dipendenti fuq l-aċidu saliċiliku u tiffaċilita t-tkabbir batterjali fuq pjanti infettati bil-virus. Phytol Ġdid. 2016, 211, 1020–1034. [CrossRef]
60. Machado, JPB; Calil, IP; Santos, AA; Fontes, EP Kontroll translazzjonali fl-immunità antivirali tal-pjanti. Genet. Mol. Biol. 2017, 40, 292–304. [CrossRef]
61. Carvalho, CM; Santos, AA; Pires, SR; Rocha, CS; Saraiva, DI; Machado, JPB; Mattos, KE; Fietto, LG; Fontes, Traffikar Nukleari Regolat EPB ta 'rpL10A Medjat minn NIK1 Jirrappreżenta Strateġija ta' Difiża taċ-Ċelloli tal-Pjanti kontra l-Virus. PLoS Pathog. 2008, 4, e1000247. [CrossRef] [PubMed]
62. Rocha, CS; Santos, AA; Machado, JPB; Fontes, EP Il-proteina ribosomali simili L10/QM hija komponent tas-sinjalar antivirali medjat minn NIK. Viroloġija 2008, 380, 165–169. [CrossRef] [PubMed]
Marco Aurélio Ferreira, Ruan M. Teixeira u Elizabeth PB Fontes.
For more information:1950477648nn@gmail.com