

Sistemi Antivirali tal-Ħmira Diversi Jipprevjenu Patoġenesi Letali Ikkawżata Mill-Mycovirus LA
Dec 01, 2023
Studji reċenti juru li s-sistemi antivirali huma kkonservati b'mod notevoli minn batterji sal-mammiferi, li juru li għarfien uniku dwar dawn is-sistemi jista 'jinkiseb bl-istudju ta' organiżmi mikrobjali. B'differenza mill-batterji, madankollu, fejn l-infezzjoni tal-fagi tista 'tkun letali, l-ebda konsegwenza virali ċitotossika mhi magħrufa fil-ħmira li tibdid Saccharomyces cerevisiae minkejja li hija infettata kronikament b'mycovirus RNA double-stranded imsejjaħ LA. Dan jibqa' l-każ minkejja l-identifikazzjoni preċedenti ta' sistemi antivirali kkonservati li jillimitaw ir-replikazzjoni LA. Hawnhekk, aħna nuru li dawn is-sistemi jikkollaboraw biex jipprevjenu r-replikazzjoni rampanti tal-LA, li tikkawża l-letalità fiċ-ċelloli mkabbra f'temperaturi għoljin. Nisfruttaw din l-iskoperta, nużaw skrin ta 'espressjoni eċċessiva biex nidentifikaw funzjonijiet antivirali għall-omologi tal-ħmira tal-proteina li torbot polyA (PABPC1) u d-dominju La li fih il-proteina Larp1, li t-tnejn huma involuti fl-immunità innata virali fil-bnedmin. Bl-użu ta' approċċ komplementari ta' telf ta' funzjoni, aħna nidentifikaw funzjonijiet antivirali ġodda għall-eżonucleases RNA konservati REX2 u MYG1; il-kumplessi regolatorji tal-kromatina SAGA u PAF1; u HSF1, ir-regolatur transcriptional prinċipali tar-rispons għall-istress proteostatiku. Permezz ta 'investigazzjoni ta' dawn is-sistemi antivirali, nuru li l-patoġenesi LA hija assoċjata ma 'rispons ta' stress proteostatiku attivat u l-akkumulazzjoni ta 'aggregati ta' proteini ċitotossiċi. Dawn is-sejbiet jidentifikaw l-istress proteotossiku bħala kawża sottostanti tal-patoġenesi LA u javvanzaw aktar il-ħmira bħala sistema mudell b'saħħitha għall-iskoperta u l-karatterizzazzjoni ta 'sistemi antivirali kkonservati.
Ir-razez kollha tal-laboratorju u l-biċċa l-kbira tal-iżolati ambjentali tal-ħmira tal-ħmira S. cerevisiae huma infettati b'virus RNA double-stranded (dsRNA) imsejjaħ LA (1, 2). LA tappartjeni għall-familja Totiviridae mifruxa b'mod wiesa 'ta' viruses dsRNA endoġeni. Bħall-viruses kollha ta 'din il-familja, il-ġenoma LA dsRNA huwa ppakkjat fi virion li jipproteġih mid-diġestjoni medjata mill-host. Toqob fil-virion jippermettu l-estrużjoni tat-traskrizzjonijiet tal-RNA fiċ-ċitosol li jikkodifika l-proteina tal-kapsid, Gag, li tinkludi l-biċċa l-kbira tal-partiċella. It-traskrizzjoni LA tikkodifika wkoll proteina tal-fużjoni Gag-pol, prodotta f'livelli ħafna aktar baxxi mill-proteina Gag, li tippossjedi attività RNA polymerase dipendenti fuq l-RNA. Kull virion fih proteina Gag-pol, li tirrappreżenta r-replikazzjoni u t-traskrizzjoni LA fi ħdan il-partiċella. L-inkapsidazzjoni tat-traskrizzjonijiet virali fi ħdan partiċelli naxxenti u s-sinteżi tal-linja tal-RNA negattiva minn Gag-pol biex jiffurmaw il-ġenoma dsRNA jikkompletaw iċ-ċiklu ta 'replikazzjoni LA (2). Biex tipproduċi dawn il-proteini, LA timpjega karatteristiċi tipiċi tal-viruses RNA misjuba fil-bnedmin, inkluż mekkaniżmu ta '"tapp-snatching" li jforni traskrizzjonijiet LA b'għatu 5′-methyl u mekkaniżmu ribosomali frameshifting biex jipproduċu proteini tal-fużjoni Gag u Gag-pol minn traskrizzjoni waħda (3, 4).

cistanche tubulosa-titjib tas-sistema immuni
Studji reċenti ta 'sistemi antivirali batterjali wrew li jaqsmu konservazzjoni evoluzzjonarja notevoli mal-bnedmin, li jiżvelaw il-potenzjal ta' organiżmi mikrobi li jipprovdu għarfien ġdid dwar l-immunità innata virali (5-11). Tabilħaqq, studji bikrija li jinvolvu LA wasslu għall-iskoperta ta 'żewġ sistemi antivirali li sussegwentement intwera li jikkontribwixxu għall-immunità intrinsika kontra viruses RNA diversi fil-mammiferi (12-17). L-ewwel minn dawn is-sistemi antivirali tinvolvi l-ġeni SKI2, 3, u 8, li jikkodifikaw subunitajiet ta 'kumpless ikkonservat assoċjat ma' ribosome li jopponi t-traduzzjoni ta 'traskrizzjonijiet li m'għandhomx dnub poly(A) bħal dawk kodifikati minn LA (18-23). Mogħdija separata ta 'attenwazzjoni LA sseħħ permezz ta' Xrn1 (magħruf ukoll bħala SKI1), 5′-3′ exoribonuclease li tiddegrada mRNAs mingħajr limitu (24–26).
Riċentement sibna li l-endonukleażi mitokondrijali tad-DNA/RNA Nuc1 tirreprimi l-akkumulazzjoni ta 'LA f'ċelluli sporulanti, li tirrappreżenta mogħdija antivirali ġdida tal-ħmira (27). Nuc1 huwa omologu ta 'endonuclease G (EndoG) misjub fl-ewkarjoti kollha u ħafna prokarjoti u huwa l-aktar magħruf għar-rwol tiegħu fil-promozzjoni tal-frammentazzjoni tal-ġenoma waqt il-mewt taċ-ċelluli programmata tal-mammiferi, mekkaniżmu prominenti ta' difiża virali (28, 29). B'mod intriganti, il-mewt taċ-ċelluli programmata hija intrinsika għall-isporulazzjoni tal-ħmira, u Nuc1 jifframmenta d-DNA minn prodotti mejotiċi li jmutu matul dan il-proċess minbarra r-rwol tiegħu fl-attenwazzjoni tal-livelli virali LA li jintirtu mill-ispori li jibqgħu ħajjin (27, 30, 31).
Minkejja l-preżenza kullimkien ta 'LA f'razez tal-laboratorju, ma kien hemm l-ebda konsegwenza ta' fitness attribwita lilha u għalhekk LA hija fil-biċċa l-kbira meqjusa bħala commensal li ma jagħmilx ħsara. Hawnhekk, nuru li l-infezzjoni LA hija fil-fatt fatali għall-ħmira u li għandha tiġi attenwata b'mod attiv permezz ta 'immunità innata virali biex tiġi ppreservata l-vijabbiltà. Speċifikament, f'razez li m'għandhomx passaġġi antivirali NUC1 u SKI li jaġixxu b'mod parallel, in-numru tal-kopja LA jiżdied b'mod massiv, li jwassal għal letalità f'temperaturi għoljin.
cistanche tubulosa-titjib tas-sistema immuni
Aħna rraġunajna li aktar karatterizzazzjoni ta 'LA u l-fatturi li jżommu r-replikazzjoni tagħha f'livell baxx jistgħu jiżvelaw sistemi antivirali ġodda. L-identifikazzjoni tal-kundizzjonijiet li jwasslu għall-patoġenesi LA ppermettietna nużaw approċċi bijoinformatiċi u ta 'screening ġenetiku 'l quddiem biex niskopru ġeni antivirali ġodda. Bl-użu ta' skrin għal ġeni espressi żżejjed li jrażżnu l-letalità kondizzjonali nuc1∆ ski3∆, aħna nidentifikaw funzjonijiet antivirali għall-omologi tal-ħmira tal-proteina li torbot poly(A) (PABPC1) u d-dominju La li fih il-proteina Larp1, li t-tnejn huma involuti fil-virus innate. immunità fil-bnedmin (32, 33). Barra minn hekk, studji ġenetiċi dwar it-telf tal-funzjoni identifikaw tnax-il ġene antivirali ġdid. Fost dawn huma l-koattivatur transcriptional SAGA kkonservat ħafna kumpless u diversi RNA exonucleases inklużi REX2 u MYG1, li t-tnejn li huma distinti iżda ikkaratterizzat ħażin omologi umani u batterjali (34-37).
Fl-aħħarnett, aħna nikkaratterizzaw il-patoġenesi LA bl-użu ta 'metodi bijoloġiċi taċ-ċelluli u nsibu li tagħbija virali għolja tikkawża stress proteostatiku. Peress li t-temperatura għolja hija magħrufa sew li taggrava l-istress proteostatiku, dawn l-osservazzjonijiet jissuġġerixxu li l-istress proteostatiku katastrofiku huwa l-kawża tal-letalità indotta minn LA. B'mod konsistenti ma 'din l-ipoteżi, nuru li mutanti nuc1∆ ski3∆ juru sensittività dipendenti fuq LA għal azetidine-2-carboxylic acid (AZC), analogu tal-prolina magħruf li jikkawża stress ortostatiku (38). Barra minn hekk, nuru funzjoni antivirali għal HSF1, fattur ta 'traskrizzjoni kkonservat li jħoss u jidderieġi r-rispons għal stress ortostatiku. Interessanti, l-Hsf1 tal-bniedem għandu wkoll rwoli importanti fir-replikazzjoni u/jew il-patoġeniċità ta 'viruses diversi inklużi l-HIV, SARS-Cov-2, u l-virus dengue, għalkemm il-mekkaniżmi mhumiex ċari (39). Dawn is-sejbiet jipprovdu eżempji ġodda ta 'konservazzjoni immuni intrinsika minn mikrobi għall-bnedmin u aktar ħmira ħafifa għolja bħala sistema mudell b'saħħitha għall-iskoperta ta' sistemi antivirali ġodda.
Riżultati
Is-Sistemi Antivirali tal-Ħmira NUC1, SKI, u XRN1 Jikkollaboraw biex jipprevjenu l-Patoġenesi LA.
L-istudji preċedenti tagħna ta 'NUC1 kienu ffukati fuq ċelloli mejotiċi (27). Biex tinvestiga l-funzjoni antivirali NUC1 fil-ħmira li qed tikber b'mod veġetattiv, eżaminajna n-numru tal-kopja LA f'ċelloli haploid mitotiċi fl-isfond tar-razza ta 'referenza BY4742. Aħna osservati l-livelli ta 'LA dsRNA bl-użu ta' ethidium bromide tbajja ta 'elettroforesed RNA u sabet li nuc1∆ ski3∆ mutant doppju wera żieda kbira fl-LA dsRNA (Fig. 1A). Aħna kkorroborajna dawn is-sejbiet bl-użu ta 'mikroskopija ta' immunofluworexxenza b'antikorp dsRNA użat biex jiskopri viruses RNA li jirreplikaw (40, 41). Dawn l-immaġini wrew li LA dsRNA akkumulat f'fokus, reminixxenti ta '"fabbrika virali" siti ta' replikazzjoni virali osservati fiċ-ċelloli umani (Fig. 1B u SI Appendiċi, Fig. S1) (42). B'mod konsistenti ma 'sejbiet preċedenti fi sfondi razza oħra (24, 27, 43), western blotting wera li l-livelli ta' proteina Gag kienu elevati fil-mutanti nuc1∆ u ski3∆ (Fig. 1C). Barra minn hekk, aħna wrew li nuc1∆ ski3∆ mutant doppju akkumula livelli massiv elevati Gag (Fig. 1C). Din id-dejta turi li NUC1 u SKI3 jipparteċipaw f'mogħdijiet antivirali separati u li t-telf taż-żewġ mogħdijiet jirriżulta f'tagħbija virali LA miżjuda ħafna.
Biex tiddetermina jekk it-tagħbija virali għolja ta 'LA taffettwax il-kundizzjoni taċ-ċelluli, eżaminajna t-tkabbir tal-ħmira bl-użu ta' analiżi tat-tkabbir tat-test fuq il-post. Difetti ta 'tkabbir sottili ta' mutanti singoli nuc1∆ u ski3∆ ġew osservati f'37 grad meta ċ-ċelloli tkabbru bil-gliċerol aktar milli bil-glukożju bħala s-sors tal-karbonju, kundizzjoni li taħtha l-ħmira tiddependi fuq respirazzjoni mitokondrijali (Fig. 1D). B'mod notevoli, għalkemm mutanti doppji nuc1∆ ski3∆ kiber b'mod normali fi 30 grad , huma esebiti letalità kondizzjonali f'37 grad irrispettivament mis-sors tal-karbonju (Fig. 1D). Kif mistenni, il-vijabbiltà f'temperatura għolja ġiet restawrata għal mutant doppju nuc1∆ ski3∆ permezz ta' plasmid li jesprimi NUC1-li wassal għal tnaqqis korrispondenti fil-livelli ta' Gag (Fig. 1 C u D). Biex tikkonferma li d-difett tat-tkabbir tal-mutant doppju nuc1∆ ski3∆ kien ikkawżat minn LA, bnejna razza isoġenika vulkanizzata minn LA (LA0) u ttestjajna t-tkabbir tiegħu f'temperaturi għoljin. Sibna li d-difett tat-tkabbir kien imtaffi kompletament, li jimplika li l-letalità kondizzjonali kienet riżultat ta 'replikazzjoni LA mhux ristretta (Fig. 1D). Biex nivvalutaw l-effetti ta 'numru għoli ta' kopji LA fuq l-idoneità taċ-ċelluli taħt kundizzjonijiet ta 'tkabbir ottimali, kejlna r-rati ta' proliferazzjoni f'kultura likwida. Dawn l-istudji wrew rata mnaqqsa ta’ tkabbir f’mutanti doppji nuc1∆ ski3∆ meta mqabbla mat-tip selvaġġ fi 30 grad li kien imreġġa’ lura f’razez L-A0, u juru li tagħbija għolja ta’ LA hija ta’ detriment għall-idoneità anke f’ċelloli mhux stressati (SI Appendiċi, Fig. S2).

sistema immunitarja li żżid il-pjanti cistanche
Ikklikkja hawn biex tara l-prodotti Cistanche Enhance Immunity
【Staqsi għal aktar】 Email:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Biex nikkaratterizzaw aktar kif NUC1 jinteraġixxi ma 'mogħdijiet antivirali magħrufa, ittestjajna r-relazzjoni tiegħu ma' XRN1. Sibna li mutant doppju nuc1∆ xrn1∆ akkumula livelli għoljin ħafna ta’ Gag meta mqabbel ma’ jew mutant wieħed u wera letalità kondizzjonali dipendenti fuq LA f’temperatura għolja (SI Appendiċi, Fig. S3 A u B), li jissuġġerixxi li NUC1 u XRN1 jaġixxu f’ mogħdijiet paralleli biex attenwaw LA. Li jirrifletti r-rwoli ewlenin tagħhom mhux redundant fir-regolamentazzjoni tal-mRNA bl-ingrossa, mutant doppju xrn1∆ ski3∆ huwa inviabbli, anke f'razez nieqsa LA (44). Biex niddeterminaw jekk XRN1 jirrappreżentax sistema antivirali indipendenti kemm minn NUC1 kif ukoll minn SKI3, użajna plasmid b'kopja għolja biex nesprimi żżejjed XRN1 f'mutant doppju nuc1∆ ski3∆. Tabilħaqq, osservajna tnaqqis sostanzjali fil-livelli ta 'Gag u soppressjoni tal-letalità kondizzjonali nuc1∆ ski3∆ bl-użu ta' espressjoni żejda ta 'XRN1 immexxija mill-plażmidi (Fig. 1 C u D). Aħna nikkonkludu li Nuc1, Ski3, u Xrn1 b'mod konverġenti jopponu r-replikazzjoni LA u li żdiedet b'mod massiv tagħbija virali LA f'mutanti nuc1∆ ski3∆ jew nuc1∆ xrn1∆ ikkawżaw patoġenesi letali f'temperaturi għoljin (Fig. 1E).
Skrin Ġenetiku Ibbażat fuq Bijoinformatika Jidentifika Fatturi Antivirali Ġodda.
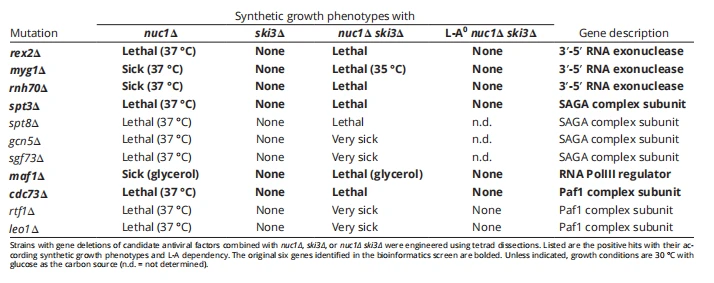
Il-letalità kondizzjonali dipendenti fuq LA ta 'mutanti doppji nuc1∆ ski3∆ qajmet il-possibbiltà li fatturi antivirali oħra jistgħu jiġu identifikati permezz ta' studji mutanti kombinatorji. Biex nidentifikaw fatturi antivirali kandidati ġodda, fittxejna database ta 'interazzjoni ġenetika kkurata għal tħassir tal-ġeni li kkawża difett ta' tkabbir sintetiku meta kkombinat ma 'nuc1∆ f'mill-inqas żewġ studji ta' screening b'rendiment għoli (45). Minbarra l-preżenza mistennija ta 'XRN1 u tħassir SKI f'dan is-sett ta' dejta, sibna sittax-il ġene addizzjonali. Aħna użajna qsim ġenetiku biex nagħmlu mutanti tripli li jikkombinaw tħassir ta 'kull wieħed minn dawn is-sittax-il ġene ma' nuc1∆ ski3∆ u kkonfermajna sitta li kkawżaw difetti severi ta 'tkabbir (Tabella 1). Aħna ddeterminajna li l-fenotipi tat-tkabbir sintetiku kkawżati minn kull wieħed minn dawn il-ġeni ġew maqluba f'razez LA0, li jissuġġerixxi li jikkodifikaw proteini antivirali (Tabella 1). Niddeskrivu l-konferma ta’ bosta minn dawn il-hits tal-iskrin bħala fatturi antivirali ġodda hawn taħt.
Ġene wieħed identifikat fl-iskrin tagħna, REX2, jikkodifika 3′-5′ RNA exonuclease ikkonservat minn batterji għall-bnedmin (35). Kemm Rex2 kif ukoll l-omologu uman REXO2 tiegħu lokalizzati fil-mitokondrija u fihom dominju EXOIII li jinsab ħafna fil-proteini prokarjotiċi u ewkarjotiċi, inkluża l-proteina antivirali stimulata bl-interferon ISG20 (36, 37, 46-48). Sibna li rex2∆ nuc1∆ double-mutant strain akkumulat livelli akbar ta 'Gag meta mqabbla ma' jew mutant wieħed u esibiti difetti ta 'tkabbir dipendenti fuq LA, inkluża letalità f'temperatura għolja (Fig. 2 A u B, u SI Appendiċi, Fig. S2). Razza rex2∆ b'mutant wieħed wera żieda żgħira fil-livelli ta' Gag, għalkemm dan l-effett kien marġinali (Fig. 2B). Biex niskrutinizzaw b'mod rigoruż il-konsegwenzi ta 'rex2∆ għan-numru tal-kopja LA, aħna kkwantifikajna LA RNA billi tuża RT-qPCR. Dan il-kejl ikkonferma li rex2∆ nuc1∆ razez jakkumulaw ħafna livelli miżjuda ta 'LA, għalkemm urew ukoll li rex2∆ mutant wieħed ma akkumulax miżjud LA RNA (Fig. 2C). Dawn is-sejbiet jissuġġerixxu li r-rwol antivirali ta 'Rex2 jidher biss fin-nuqqas tal-funzjoni NUC1. B'mod notevoli, nuc1∆ ski3∆ rex2∆ u nuc1∆ xrn1∆ rex2∆ mutanti tripli kienu inviabbli taħt il-kundizzjonijiet kollha tat-tkabbir, u dawn id-difetti ġew maqluba fil-razez L-A0 (Fig. 2D). Dawn is-sejbiet juru l-potenzjal patoġeniku sever tal-mikovirus LA u jidentifikaw rwol antivirali ġdid għal RNA exonuclease lokalizzat mitokondrialment konservat ħafna.

Fig. 1. L-attenwazzjoni LA tipproteġi l-ħmira mill-patoġenesi letali. (A) Ġell imtebba’ bil-bromur ta’ ethidium ta’ RNA totali ppreparat mir-razez indikati huwa muri, bil-medda ta’ 4.6 kb LA dsRNA indikata bi vleġġa. (B) L-immunofluworexxenza ntużat biex tara dsRNA LA (oranġjo) fiċ-ċelloli tal-ġenotipi indikati. Dawn ir-razez ġew vulkanizzati mill-virus dsRNA L-BC dgħajjef abbundanti biex jeliminaw it-tbajja 'l-isfond (Dettalji tal-Metodu). It-tbajja tad-DNA DAPI hija bil-blu. (Scale bar, 1 μm.) (C) Western blotting ta 'LA Gag u livelli ta' proteina 3-phosphoglycerate kinase (Pgk1) fir-razez indikati huwa muri. Markers tal-piż molekulari huma indikati fuq il-lemin. (D) Assaġġi tat-tkabbir tat-test spot tar-razez minn 1C huma murija. Razez kienu spotted fuq -Leu media li kien fihom jew glukożju jew glycerol u mkabbra fit-temperaturi indikati. (E) Il-proteina mitokondrijali Nuc1 tikkollabora mal-proteini ċitosoliċi Xrn1 u SkiC biex tirregola l-livell tal-proteina LA u tiżgura l-idoneità taċ-ċelluli.
Ġene ieħor identifikat fl-iskrin tagħna kien MYG1, l-omologu tal-ħmira tal-Ġene 1 tal-proliferazzjoni tal-MelanocYte tal-bniedem, 3′-5′ RNA exonuclease li għandu omologi fit-taxa kollha (34). Razez mutanti li jgħaqqdu myg1∆ u nuc1∆ urew żidiet kbar fil-proteina Gag u LA RNA meta mqabbla mal-mutanti singoli u wrew difetti severi ta 'tkabbir dipendenti fuq LA f'temperatura għolja u f'kultura likwida (Fig. 2C u SI Appendiċi, Fig. S2, S4 A u C). Bħal rex2∆, strain mutant wieħed myg1∆ wera ftit żieda fil-livell Gag u l-ebda bidla fl-RNA LA (Fig. 2C u SI Appendiċi, Fig. S4C). Konna kapaċi nirkupraw mutanti tripli nuc1∆ ski3∆ myg1∆, għalkemm kienu qed jikbru bil-mod estremament bi 30 grad u akkumulaw livelli saħansitra ogħla ta 'Gag (SI Appendiċi, Fig. S4 A u C). Dawn id-difetti tat-tkabbir ġew maqluba wkoll f'razez L-A0 (Appendiċi SI, Fig. S4A). MYG1 għalhekk jirrappreżenta fattur antivirali ġdid, li jaġixxi b'mod parallel kemm għal NUC1 kif ukoll għall-kumpless SKI.
Tabella 1. Identifikazzjoni ta 'fatturi antivirali kandidati ġodda bl-użu ta' approċċ bijoinformatiku
Mutazzjonijiet li jwasslu għal espressjoni żejda ta 'MYG1 tal-bniedem huma assoċjati mad-diżordni awtoimmuni vitiligo, li jissuġġerixxi li MYG1 jista' jkollu xi rwol fl-immunità innata tal-bniedem (49, 50). Esplorajna din il-possibbiltà bl-użu ta 'plasmid li jesprimi MYG1 uman taħt il-kontroll ta' promotur tal-ħmira kostituttiva (34) u sibna li MYG1 uman salvat id-difett tat-tkabbir kondizzjonali ta 'mutant nuc1∆ myg1∆ (SI Appendiċi, Fig. S4D). Dawn is-sejbiet juru li l-funzjoni antivirali tal-ħmira MYG1 tista 'titwettaq minn MYG1 uman, li jissuġġerixxi funzjoni antivirali potenzjali għal MYG1 fil-bnedmin.

Fig. 2. Fatturi antivirali ġodda huma identifikati billi tiġi sfruttata l-patoġenesi tal-LA. (A) Analiżi spot ta 'razez difettużi f'NUC1 u REX2 hija murija. Razez ġew spotted fuq midja SC li kien fihom jew glukożju jew gliċerol u mkabbra fit-temperatura indikata. (B) Western blotting ta 'LA Gag u livelli ta' proteina Pgk1 ta 'razez fil-Fig. 2A. Markers tal-piż molekulari huma indikati fuq il-lemin. (C) LA RNA ġie kkwantifikat minn qPCR u normalizzat għal ACT1 RNA endoġenu. Il-livell medju ta' RNA u SD huma murija. n=5. *P < {{10}}.05, **P < 0.01, ***P < 0.001 (test t tal-Istudent mhux imqabbad). (D) Analiżi spot ta 'razez difettużi fi tliet mogħdijiet antivirali paralleli li fihom plasmid li jesprimi NUC1 hija murija. Razez huma spotted fuq -URA media jew medja sintetika kompluta (SC) supplimentata b'0.1% 5-aċidu fluwororotiku (5-FOA).
Kategorija oħra tal-ġeni identifikata bl-użu tal-iskrin bijoinformatiku tagħna kienet l-espressjoni tal-ġeni. CDC73 u SPT3 jikkodifikaw subunitajiet tal-kumplessi kkonservati assoċjati mal-kromatina PAF1 u SAGA, rispettivament. Kemm cdc73∆ kif ukoll spt3∆ ikkawżaw letalità dipendenti fuq LA meta kkombinati ma' nuc1∆ ski3∆ (Tabella 1). Minħabba li SAGA (SptAda-Gcn5-Acetyltransferase) intwera li jirregola l-espressjoni tal-ġeni antivirali fil-fungu Cryphonectria parasitica tat-tbajja tal-qastan, investigajna aktar dan il-kumpless (51). A spt3∆ nuc1∆ double-mutant strain akkumulat livelli miżjuda ta 'Gag u esibit LA-letality dipendenti f'temperaturi għoljin (SI Appendiċi, Fig. S4 B u C). SAGA huwa kumpless kbir ta 'proteini u kkonfermajna li t-tħassir f'diversi ġeni oħra li jikkodifikaw is-subunità SAGA kellhom l-istess konsegwenzi fenotipiċi bħal spt3∆ (Appendiċi SI, Tabella S1 u S4C). Flimkien mas-sejbiet minn C. parasitica, dawn ir-riżultati jissuġġerixxu li l-kumpless SAGA jikkontrolla l-espressjoni tal-ġeni antivirali fi speċi fungali diversi.
L-Iscreening Għoli ta' Soppressjoni tal-Kopja Jidentifika Fatturi Antivirali tal-Ħmira li Huma wkoll Antivirali fil-Bnedmin.
Peress li l-espressjoni żejda ta 'XRN1 trażżan id-difetti tat-tkabbir ta' razza nuc1∆ ski3∆, aħna ipoteżijna li espressjoni żejda ta 'fatturi antivirali oħra tipproduċi effett simili, li jista' jintuża bħala skrin biex jidentifika sistemi antivirali ġodda. Aħna impjegajna skrin ta 'soppressjoni tal-plasmid b'kopja għolja biex niskopru ġeni li l-espressjoni żejda tagħhom ttaffi l-letalità kondizzjonali ta' razza nuc1Δ ski3Δ (Dettalji tal-Metodu). Bl-użu ta 'dan l-iskrin, identifikajna SRO9, SLF1, u PAB1 bħala suppressors ta' kopja għolja ta 'nuc1∆ ski3∆, li kollha jikkodifikaw proteini li jorbtu RNA assoċjati mar-ribosomi (Fig. 3A) (52, 53). Sro9 u Slf1 huma proteini paralogous li fihom dominju lupus-autoantigen (La) li jinsabu b'mod wiesa 'fl-ewkarjoti. Notevolment, l-omologu uman tagħhom, Larp1, ġie identifikat reċentement fi skrins għal proteini marbuta mas-SARS-Cov-2 flimkien mal-linja ssRNA jew nukleokapsid (32, 54). Larp1 kien fokus ewlieni f'wieħed minn dawn l-istudji u ntwera li jnaqqas ir-replikazzjoni tas-SARS-Cov-2 fiċ-ċelloli umani, għalkemm il-mekkaniżmu tiegħu mhux magħruf (32). PAB1 tikkodifika l-proteina PolyA-Binding konservata ħafna, li hija mira komuni ta 'inibizzjoni virali fil-bnedmin permezz ta' mekkaniżmi differenti (33). Sibna li l-espressjoni żejda ta 'PAB1 jew SRO9 naqqset b'mod sinifikanti l-livelli ta' Gag f'mutant nuc1∆ ski3∆, u tispjega l-fenotipi ta 'salvataġġ tagħhom (Fig. 3B). B'mod kurjuż, anki jekk l-espressjoni żejda SLF1 salvat id-difett tat-tkabbir nuc1∆ ski3∆ daqs SRO9, ma wassal għal ebda tnaqqis fil-livelli Gag (Fig. 3 A u B). Dawn is-sejbiet jissuġġerixxu li PAB1 u SRO9 isalvaw iċ-ċelloli billi jrażżnu r-replikazzjoni LA u li SLF1 jipproteġi ċ-ċelloli mill-konsegwenzi patoġeniċi ta 'replikazzjoni virali elevata.

cistanche tubulosa-titjib tas-sistema immuni
Numru għoli ta 'Kopja LA Iwassal għal Stress Proteostatiku Ċitotossiku.
Biex tikseb għarfien dwar il-mekkaniżmi diverġenti tal-attivitajiet antivirali Sro9 u Slf1, ikkunsidrajna x'jistgħu jkunu l-konsegwenzi fiżjoloġiċi tal-patoġenesi LA u kif SRO9/SLF1 jista 'jkollhom impatt differenzjali. Aħna nnutajna studju preċedenti li fih tħassir ta’ NUC1 jew ta’ ġeni kumplessi SKI wassal għal induzzjoni dgħajfa ta’ ġene reporter GFP ikkontrollat minn Hsf1 (55), fattur ta’ traskrizzjoni kkonservat li jħoss stress proteostatiku u jattiva r-rispons tal-espressjoni tal-ġeni (56-58). ). Bl-użu taċ-ċitometrija tal-fluss ma 'dan ir-reporter (HSE-GFP), aħna kkonfermajna dawn ir-riżultati u ddeterminajna li mutant doppju nuc1∆ ski3∆ ikkawża attivazzjoni sinerġistika u dipendenti fuq LA ta' HSE-GFP (Fig. 3C u SI Appendiċi, Fig. S5). Aħna ipoteżijna li l-produzzjoni massiva ta 'Gag osservata f'mutanti nuc1∆ ski3∆ ammontaw għal dan ir-rispons għall-istress proteostatiku. Jappoġġaw dan, l-attivazzjoni HSE-GFP ta 'mutant doppju nuc1∆ ski3∆ ġiet lura permezz ta' PAB1 jew SRO9 espressjoni żejda, tirrifletti l-konsegwenzi ta 'dawn il-ġeni għall-akkumulazzjoni ta' Gag (Fig. 3 B u C). Notevolment, l-espressjoni żejda tal-paralogu SRO9 SLF1 ma pprovdietx l-attivazzjoni ta 'HSE-GFP. Id-diverġenza evoluttiva tal-ġeni paralogous SRO9 u SLF1 għalhekk irriżulta f'mekkaniżmi antivirali differenti, b'SRO9 li jrażżan l-akkumulazzjoni tal-proteina virali u stress proteostatiku assoċjat u SLF1 apparentement jipproteġu ċ-ċelloli mill-konsegwenzi tossiċi ta 'stress proteostatiku indott minn virus.
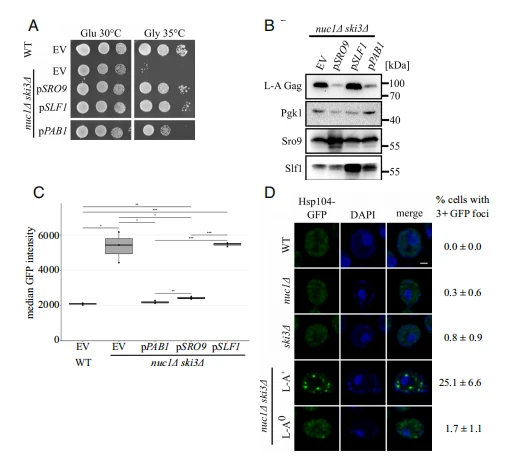
Fig. 3. Espressjoni żejda ta 'fatturi ta' kontroll tat-traduzzjoni ttaffi l-patoġenesi LA. (A) Assaġġi ta 'tkabbir tat-test spot tas-soppressori tal-kopja għolja SRO9, SLF1, u PAB1 huma murija. Razez ġew spotted fuq midja –LEU li kien fihom jew glukożju jew gliċerol u mkabbra fit-temperaturi indikati. (B) Western blotting għal livelli ta 'proteina LA Gag, Pgk1, Sro9, u Slf1 fir-razez minn 3A. Markers tal-piż molekulari huma indikati fuq il-lemin. (C) Intuża ċ-ċitometrija tal-fluss biex titkejjel l-espressjoni tal-HSE GFP fir-razez indikati (n {{10}}). L-ewwel u t-tielet kwartili huma mmarkati bil-kaxxi griżi. L-intensità medjana tal-GFP hija mmarkata bil-vireg suwed ġewwa. *P < 0.05, **P < 0.01, ***P < 0.001 (test t tal-Istudent mhux imqabbad). (D) Mikroskopija tal-fluworexxenza ta' Hsp104-GFP f'razez indikati. Iċ-ċelluli kienu mtebbgħin b'DAPI biex jivviżwalizzaw nuklei. (Istrixxa tal-iskala, 1 μm.) Il-perċentwal ta' ċelloli b'foċi GFP 3+ jidher fuq il-lemin. n=3. 75 sa 140 ċellula ġew magħduda għal kull replika.
L-istress proteostatiku ħafna drabi huwa assoċjat ma 'l-akkumulazzjoni ta' aggregati ta 'proteini ċitotossiċi li jistgħu jiġu viżwalizzati bl-użu ta' GFP fused mal-proteina disaggregase Hsp104, mira diretta ta 'attivazzjoni traskrizzjoni Hsf1 li hija magħrufa li ko-lokalizza ma' aggregati ta 'proteini (59, 60). Biex nesploraw aktar id-difetti proteostatiċi assoċjati mal-patoġenesi tal-LA, użajna mikroskopija fluworexxenti biex nivisualizzaw il-foċi ta 'Hsp104-GFP f'varjetà ta' razez. Kif mistenni, ċelluli tat-tip selvaġġ imkabbra fi 30 grad rarament akkumulaw fokus osservabbli Hsp104-GFP. Filwaqt li mutanti singolu nuc1∆ u ski3∆ jixbħu tip selvaġġ, b'mod impressjonanti, mutant doppju nuc1∆ ski3∆ esibit aktar minn 25% ta 'ċelluli bi tlieta jew aktar Hsp 104-foċi GFP (Fig. 3D). Bħal fil-fenotipi l-oħra kollha li osservajna għal nuc1∆ ski3∆, l-akkumulazzjoni ta 'foċi Hsp104-GFP kienet dipendenti fuq il-preżenza ta' LA (Fig. 3D). Dawn is-sejbiet juru li tagħbija virali għolja kkawżata mit-tħassir ta 'NUC1 u SKI3 wasslet għall-akkumulazzjoni ta' fokus ta 'Hsp104-GFP indikattiv ta' aggregazzjoni ta 'proteini ċitotossiċi.
Peress li l-patoġenesi tal-LA kienet korrelatata ma 'difetti proteostatiċi, aħna ipoteżijna li Hsf1 jiffunzjona bħala fattur antivirali. It-tħassir ta 'HSF1 huwa letali, għalhekk użajna l-allel sensittiv għat-temperatura hsf1-848 li ġej minn ġabra ta' razez ippubblikata qabel (61). L-hsf1-848 allele wera nuqqas ta 'tkabbir f'39 grad, fenotip ta' tkabbir intermedju f'37 grad, u l-ebda difett apparenti ta 'tkabbir f'35 grad (Fig. 4A). Assays spot test wrew li l-fenotipi tat-tkabbir hsf1-848 f'35 grad u 37 grad kienu mtejba ħafna meta kkombinati jew ma 'nuc1∆ jew ski3∆ u li dawn id-difetti tat-tkabbir ġew maqluba f'razez li ma kellhomx il-virus LA (Fig. 4A) . Kif mistenni, l-invitabilità tar-razez mutanti hsf1-848 kollha ppersistew f'ċelloli mkabbra f'39 grad irrispettivament mill-preżenza ta' LA. Barra minn hekk, bl-użu tad-dissezzjonijiet tat-tetrad, urejna li l-mutanti tripli hsf{1-848 nuc1∆ ski3∆ kienu inviabbli f'temperatura permissiva jekk kienu infettati b'LA iżda b'saħħithom jekk kienu ġejjin minn razza LA0 (SI Appendiċi, Fig. S6). Bl-użu tal-western blotting, sibna li hsf1-848 nuc1∆ u hsf1-848 ski3∆ akkumulaw ammonti miżjuda ta 'LA Gag meta mqabbla mal-mutanti singoli (Fig. 4B). Flimkien mal-istudji bijoloġiċi taċ-ċelluli tagħna, dawn is-sejbiet jissuġġerixxu li r-rispons għall-istress proteostatiku regolat Hsf1- jiffunzjona bħala sistema antivirali fil-ħmira, li topponi l-konsegwenzi patoġeniċi tar-replikazzjoni rampanti tal-LA.
Peress li d-difetti proteostatiċi huma magħrufa li huma aggravati u jwasslu għal ċitotossiċità f'temperaturi għoljin (59), mudell sempliċi jattribwixxi l-konsegwenzi letali tal-patoġenesi LA f'temperaturi għoljin għal stress proteostatiku katastrofiku. Biex nittestjaw aktar dan il-mudell, ikkurajna razez b'aċidu azetidine-2-carboxylic acid (AZC), analogu tal-prolina li huwa inkorporat fi proteini li jwassal għal stress ortostatiku (38). Dawn l-esperimenti wrew li nuc1∆ ski3∆ wera sensittività qawwija għal AZC b'mod dipendenti fuq il-virus LA (Fig. 4C u SI Appendiċi, Fig. S6). Barra minn hekk, sibna li nuc1∆ ski3∆ wera sensittività għal 5% etanol, kundizzjoni li tikkawża wkoll difetti proteostatiċi, iżda mhux għal 0.5 M NaCl, li tikkawża stress osmotiku (SI Appendiċi, Fig. S6). Dawn is-sejbiet jissuġġerixxu li l-konsegwenzi letali tal-patoġenesi LA huma speċifikament dovuti għal stress proteostatiku enormi.

Fig. 4. Ir-rispons tax-xokk tas-sħana jrażżan il-patoġenesi tal-LA. (A) Analiżi spot ta 'razez difettużi f'HSF1, NUC1, u SKI3 bi jew mingħajr LA hija murija. Razez kienu spotted fuq midja SC li kien fihom glukożju u mkabbra fit-temperatura indikata. (B) Western blotting għal livelli ta 'proteina LA Gag u Pgk1 ta' razez indikati. Markers tal-piż molekulari huma indikati fuq il-lemin. (C) Analiżi spot ta' razez ittrattati bl-analogu proteotossiku tal-prolina, azetidine-2-carboxylic acid (AZC), hija murija. Razez ġew spotted fuq midja SC li kien fihom glukożju supplimentat bi jew mingħajr 0.1 mg/mL ta 'AZC u mkabbra fi 30 grad.
Diskussjoni
Minkejja l-preżenza kullimkien tagħha f'razez tal-laboratorju, studji tal-virus LA dsRNA kienu limitati minħabba n-natura apparentement beninna tiegħu. Hawnhekk, aħna nuru li LA għandha konsegwenzi profondi għall-ħmira meta r-replikazzjoni tagħha ma tkunx ikkontrollata u li diversi sistemi immuni intrinsiċi jżommu r-replikazzjoni LA f'livell tollerabbli. Speċifikament, nuru li, f'razez li m'għandhomx il-ġeni antivirali NUC1 u SKI3 li jaġixxu b'mod parallel, ir-replikazzjoni LA hija regolata b'mod massiv, li twassal għal stress ortostatiku u letalità kondizzjonali f'temperaturi għoljin. Billi użaw din l-iskoperta ġdida, użajna skrins bijoinformatiċi u ġenetiċi 'l quddiem biex nidentifikaw ġeni tal-ħmira ġodda li jiffunzjonaw biex jirrestrinġu r-replikazzjoni LA jew jipproteġu ċ-ċelloli mill-konsegwenzi patoġeniċi ta' replikazzjoni LA bla rażan. Peress li dawn l-iskrins ma kinux saturati, il-ġenoma tal-ħmira x'aktarx tikkodifika bosta fatturi antivirali oħra. Saru bosta studji insightful fil-ħmira li tistudja r-replikazzjoni ta 'RNAs virali introdotti b'mod esoġenu minn organiżmi oħra u se jkun interessanti li jiġi ddeterminat jekk il-fatturi antivirali LA jaġixxux b'mod simili fuq dawn l-RNAs virali (62, 63).
Minħabba r-riskju ċar ta 'infezzjoni LA, kif madankollu tippersisti quddiem l-attività antivirali dejjem preżenti hija mħawwda. Spjegazzjoni għal dan il-paradoss tista' tkun li LA tipprovdi benefiċċju ta' kontrobilanċ. Benefiċċju wieħed possibbli ta 'LA huwa li jippermetti lil xi razez iżommu viruses satellitari li jikkodifikaw tossini mnixxija li joqtlu ċelluli ġirien mhux infettati. Madankollu, LA hija preżenti f'ħafna razez li m'għandhomx satelliti "Killer", għalhekk din l-ispjegazzjoni mhix biżżejjed biex tispjega l-persistenza tal-infezzjoni LA. Aħna għalhekk nispekulaw li LA jista 'jkollha xi benefiċċju kriptiku li jikkontrobilanċja l-potenzjal ta' ħsara tagħha.
L-iskoperta tagħna ta 'Rex2 bħala fattur ta' attenwazzjoni virali tespandi l-armament ta 'fatturi antivirali mitokondrijali magħrufa lil hinn minn Nuc1 u tissuġġerixxi li l-mitokondrija huma ċentru antivirali ewlieni fil-ħmira. Tabilħaqq, il-mitokondrija jservu rwoli ċentrali fid-difiża virali bħala regolatur ipprogrammat tal-mewt taċ-ċelluli u bħala pjattaforma għas-sinjalar antivirali fil-bnedmin. Kif in-nukleasi mitokondrijali jtaffu virus li joqgħod fiċ-ċitosol fil-ħmira? Possibbiltà waħda hija li dawn l-enzimi, filwaqt li huma mmirati lejn il-mitokondrija, jistgħu madankollu jakkumulaw għal livelli baxxi iżda suffiċjenti fiċ-ċitosol biex iwettqu l-attenwazzjoni tal-LA direttament. B'mod konsistenti ma 'din l-ipoteżi, aħna wrejna qabel li Nuc1 jakkumula fiċ-ċitosol taċ-ċelluli mejotiċi, għalkemm il-metodi tagħna ma setgħux jiskopruh fiċ-ċitosol taċ-ċelluli mitotiċi (27). Ipoteżi oħra hija li xi aspett taċ-ċiklu ta 'replikazzjoni LA jseħħ f'assoċjazzjoni intima mal-mitokondrija. Per eżempju, traskrizzjonijiet LA jistgħu jassoċjaw ma 'u possibilment jaqsmu l-mitokondrija, jesponuhom għal Nuc1 u/jew Rex2. Ir-riżultati tagħna jenfasizzaw l-importanza ġenerali potenzjali tal-mitokondrija għall-immunità innata virali fl-ewkarjoti u jpoġġu s-sistema tal-ħmira-LA bħala mudell qawwi għal aktar studji ta 'dan is-suġġett.
Il-kumpless SKI antivirali assoċjat mat-traduzzjoni tar-ribosomi u l-identifikazzjoni tagħna ta 'Pab1, Sro9, u Slf1 bħala soppressori tal-kopja għolja tal-patoġenesi LA jiżvelaw aktar ir-ribosomi li jittraduċu bħala ċentru ewlieni tal-attività antivirali tal-ħmira. Is-sejba li PAB1 (proteina li torbot polyA) tirreprimi LA hija sorprendenti minħabba n-nuqqas ta 'dnub polyA fit-traskrizzjonijiet LA, li tissuġġerixxi li Pab1 ma jaġixxix fuq LA direttament. Sejbiet preċedenti wrew li traskrizzjonijiet LA jikkompetu ma 'mRNAs tal-ħmira polyA + għall-qbid ta' subunitajiet ribosomali 60S biex jiffurmaw kumplessi 80S li jittraduċu (64). Mudell wieħed li jispjega s-sejbiet tagħna huwa li Pab1 itejjeb it-traduzzjoni ta 'mRNAs li fihom denb polyA, li mbagħad inaqqas id-disponibbiltà ta' subunitajiet 60S għal traskrizzjonijiet LA għat-traduzzjoni. Ir-rwoli ta 'Sro9 u Slf1 fit-traduzzjoni huma inqas mifhuma tajjeb, iżda l-funzjonijiet tagħhom jistgħu bl-istess mod jirrelataw mal-kompetizzjoni tat-traskrizzjonijiet LA għal subunitajiet 60S. Importanti, l-omologi ta 'Pab1 u Sro9/Slf1 huma involuti fid-difiża virali tal-bniedem u aktar studji ta' dawn il-ġeni fil-ħmira se jitfgħu dawl fuq mekkaniżmi antivirali kkonservati mill-ħmira għall-bnedmin.

sistema immunitarja li żżid il-pjanti cistanche
Aħna identifikajna rwol antivirali għall-fattur ta' traskrizzjoni kkonservat HSF1 flimkien ma' rispons ta' stress proteostatiku indott mill-LA li jinvolvi l-akkumulazzjoni ta' fokali ta' Hsp104-GFP, markatur HSF1-attivat ta' aggregati ta' proteini ċitotossiċi. Dawn ir-riżultati jappoġġjaw il-mudell li fih il-patoġenesi tal-LA hija kkawżata minn stress proteotossiku. Skoprejna wkoll funzjoni antivirali għall-kumpless SAGA, li ntwera li jaġixxi bħala koattivatur tal-induzzjoni tal-ġene fil-mira Hsf1 wara xokk tas-sħana (65, 66). Dawn l-osservazzjonijiet jissuġġerixxu li livelli għoljin ta 'LA jwasslu għall-attivazzjoni dipendenti fuq SAGA ta' ġeni fil-mira Hsf1 li mbagħad iwettqu l-funzjoni antivirali, li jdawwal programm potenzjali ta 'espressjoni tal-ġeni antivirali fil-ħmira li tibdid. Dan il-mudell jagħmel ħafna previżjonijiet li jistgħu jiġu ttestjati li jistgħu jkunu rilevanti għall-patoġenesi virali f'organiżmi oħra. Tabilħaqq, HSF1 uman jikkontrolla wkoll l-espressjoni ta 'fatturi regolatorji proteolitiċi. Filwaqt li ġew deskritti funzjonijiet antivirali ta 'HSF1 uman, mhuwiex ċar x'rwol għandu r-rispons għall-istress ortostatiku f'dan (39). Is-sejbiet tagħna jdawwal sistema qawwija biex tagħraf il-funzjoni antivirali ta 'Hsf1 fir-rigward tar-rwol tagħha fl-attivazzjoni tar-rispons għall-istress proteostatiku.
referenzi
1. T. Nakayashiki, CP Kurtzman, HK Edskes, RB Wickner, prioni tal-ħmira [URE3] u [PSI+] huma mard. Proc. Natl. Acad. Sci. USA 102, 10575–10580 (2005).
2. RB Wickner, T. Fujimura, R. Esteban, Viruses and prions of Saccharomyces cerevisiae. Adv. Virus Res. 86, 1–36 (2013).
3. T. Fujimura, R. Esteban, Mekkaniżmu għat-tqattigħ tal-Kap fil-virus tal-RNA double-stranded LA tal-ħmira. Proc. Natl. Acad. Sci. USA 108, 17667–17671 (2011).
4. JD Dinman, T. Icho, RB Wickner, A -1 frameshift ribosomali f'virus RNA double-stranded tal-ħmira jifforma proteina tal-fużjoni gag-pol. Proc. Natl. Acad. Sci. USA 88, 174–178 (1991).
5. A. Bernheim et al., Viperins Prokaryotic jipproduċu molekuli antivirali diversi. Natura 589, 120–124 (2021).
6. A. Bernheim, R. Sorek, Is-sistema pan-immune tal-batterja: Id-difiża antivirali bħala riżorsa tal-komunità. Nat. Dun Microbiol. 18, 113–119 (2020).
7. AG Johnson et al., Masterminds batterjali jiżvelaw mekkaniżmu antik ta 'mewt taċ-ċelluli. Science 375, 221–225 (2022).
8. BR Morehouse et al., STING ċikliku dinukleotide sensing oriġinaw fil-batterja. Natura 586, 429–433 (2020).
9. G. Ofir et al., Attività antivirali ta 'dominji TIR batterjali permezz ta' molekuli ta 'sinjalazzjoni immuni. Natura 600, 116–120 (2021).
10. KM Slavik et al., riċetturi li jixbħu cGAS iħossu l-RNA u jikkontrollaw is-sinjalar 3'2'-cGAMP f'Drosophila. Natura 597, 109–113 (2021).
11. AT Whiteley et al., Enżimi batterjali bħal cGAS jissintetizzaw sinjali tan-nukleotidi differenti. Natura 567, 194–199 (2019).
12. HM Burgess, I. Mohr, Ċellulari 5'-3' mRNA exonuclease Xrn1 jikkontrolla l-akkumulazzjoni ta' double-stranded RNA u r-risponsi anti-virali. Mikrobi Ospitanti taċ-Ċelloli. 17, 332–344 (2015).
13. SC Eckard et al., L-eżosoma SKIV2L RNA jillimita l-attivazzjoni tar-riċetturi simili għal RIG-I. Nat. Immunol. 15, 839–845 (2014).
14. M. Miyashita, H. Oshiumi, M. Matsumoto, T. Seya, DDX60, helicase kaxxa DEXD/H, huwa fattur antivirali ġdid li jippromwovi sinjalazzjoni medjata mir-riċettur bħal RIG-I. Mol. Cell Biol. 31, 3802–3819 (2011).
15. CS Ng, DM Kasumba, T. Fujita, H. Luo, Karatterizzazzjoni spazjo-temporali tal-attività antivirali tal-aggregazzjoni XRN1-DCP1/2 kontra viruses RNA ċitoplasmiċi biex tiġi evitata l-mewt taċ-ċelluli. Cell Death Differ 27, 2363–2382 (2020).
16. RE Rigby, J. Rehwinkel, Degradazzjoni ta 'RNA fl-immunità antivirali u awtoimmunità. Xejriet Immunol. 36, 179–188 (2015).
17. F. Shiromoto et al., IL-1beta/ATF3-induzzjoni medjata tal-espressjoni ta' Ski2 ittejjeb il-virus tal-epatite B x id-degradazzjoni tal-mRNA. Biochem. Biophys. Riż. Komun. 503, 1854–1860 (2018).
18. JT Brown, X. Bai, AW Johnson, Il-proteini antivirali tal-ħmira Ski2p, Ski3p, u Ski8p jeżistu bħala kumpless in vivo. RNA 6, 449–457 (2000).
19. DC Masison et al., Decoying the cap-mRNA degradation system by a double-stranded RNA virus and poly(A)-mRNA sorveljanza minn sistema antivirali tal-ħmira. Mol. Cell Biol. 15, 2763–2771 (1995).
20. C. Schmidt et al., The cryo-EM structure of a ribosome-Ski2-Ski3-Ski8 helicase complex. Science 354, 1431–1433 (2016).
21. AM Searfoss, RB Wickner, 3' poly(A) huwa dispensabbli għat-traduzzjoni. Proc. Natl. Acad. Sci. USA 97, 9133–9137 (2000).
22. EA Toh, P. Guerry, RB Wickner, Mutanti superkiller kromosomali ta' Saccharomyces cerevisiae. J. Bacteriol. 136, 1002–1007 (1978).
23. A. Zinoviev, RK Ayupov, IS Abaeva, CUT Hellen, TV Pestova, Estrazzjoni ta 'mRNA minn Ribosomi Stallati mill-Kumpless ta' l-Iski. Mol. Ċellula 77, 1340–1349 e1346 (2020).
24. SG Ball, C. Tirtiaux, RB Wickner, Genetic control of La and L-(Bc) Dsrna copy number in killer systems of SACCHAROMYCES CEREVISIAE. Genetics 107, 199–217 (1984).
25. R. Esteban, L. Vega, T. Fujimura, 20S RNA narnavirus jisfida l-attività antivirali ta 'SKI1/XRN1 f'Saccharomyces cerevisiae. J. Biol. Chem. 283, 25812–25820 (2008).
26. PA Rowley, B. Ho, S. Bushong, A. Johnson, SL Sawyer, XRN1 huwa fattur ta' restrizzjoni tal-virus speċifiku għall-ispeċi fil-ħmira. PLoS Pathog. 12, e1005890 (2016).
27. J. Gao et al., Attenwazzjoni virali mejotika permezz ta 'passaġġ apoptotiku antenati. Proc. Natl. Acad. Sci. USA 116, 16454–16462 (2019).
28. LY Li, X. Luo, X. Wang, Endonuclease G huwa DNase apoptotiku meta jinħeles mill-mitokondrija. Nature 412, 95–99 (2001).
29. BJ Thomson, Viruses and apoptosis. Int. J. Exp. Pathol. 82, 65–76 (2001).
30. MD Eastwood, SW Cheung, KY Lee, J. Moffat, MD Meneghini, Qerda nukleari pprogrammata bl-iżvilupp waqt il-gametoġenesi tal-ħmira. Dev. Ċellula 23, 35–44 (2012).
31. MD Eastwood, MD Meneghini, Koordinazzjoni tal-iżvilupp tad-divrenzjar tal-gameti b'mewt taċ-ċelluli programmata f'ħmira sporulanti. Eukaryot Cell 14, 858–867 (2015).
32. N. Schmidt et al., The SARS-CoV-2 RNA-protein interactome f'ċelloli umani infettati. Nat. Microbiol. 6, 339–353 (2021).
33. RW Smith, NK Gray, Poly(A)-binding protein (PABP): Mira virali komuni. Biochem. J. 426, 1–12 (2010).
34. R. Grover et al., Myg1 exonuclease jgħaqqad il-programmi translazzjonali nukleari u mitokondrijali permezz tal-ipproċessar tal-RNA. Aċidi Nukleiċi Res. 47, 5852–5866 (2019).
35. EV Koonin, Dominju antik kkonservat jingħaqad mas-superfamilja li qed tikber ta' 3'-5' exonucleases. Curr. Biol. 7, R604–606 (1997).
36. M. Szewczyk et al., Human REXO2 jikkontrolla RNAs mitokondrijali qosra ġġenerati mill-ipproċessar tal-mtRNA u makkinarju ta 'decay biex jipprevjeni l-akkumulazzjoni ta' RNA double-stranded. Aċidi Nukleiċi Res. 48, 5572–5590 (2020).
37. Y. Zuo, MP Deutscher, Exoribonuclease superfamilies: Analiżi strutturali u distribuzzjoni filoġenetika. Aċidi Nukleiċi Res. 29, 1017–1026 (2001).
38. EW Trotter, L. Berenfeld, SA Krause, GA Petsko, JV Gray, Protein misfolding u temperatura up-shift jikkawżaw arrest G1 permezz ta 'mekkaniżmu komuni dipendenti fuq fattur ta' xokk tas-sħana f'Saccharomyces cerevisiae. Proc. Natl. Acad. Sci. USA 98, 7313–7318 (2001).
39. A. Reyes, AJ Navarro, B. Diethelm-Varela, AM Kalergis, PA Gonzalez, Hemm rwol għal HSF1 f'infezzjonijiet virali? FEBS Open Bio 12, 1112–1124 (2022).
40. F. Weber, V. Wagner, SB Rasmussen, R. Hartmann, SR Paludan, Double-stranded RNA huwa prodott minn viruses RNA ta 'strand pożittiv u viruses tad-DNA iżda mhux f'ammonti li jistgħu jinstabu minn viruses RNA ta' strand negattiv. J. Virol. 80, 5059–5064 (2006).
41. S. Welsch et al., Kompożizzjoni u arkitettura tridimensjonali tas-siti ta 'replikazzjoni u assemblaġġ tal-virus tad-dengue. Mikrobi Ospitanti taċ-Ċelloli. 5, 365–375 (2009).
42. I. Fernandez de Castro, R. Tenorio, C. Risco, Fabbriki ta 'assemblaġġ ta' virus f'dinja tal-lipidi. Curr. Opinja. Virol. 18, 20–26 (2016).
43. YX Liu, CL Dieckmann, Produzzjoni żejda ta 'partiċelli simili ta' virus tal-ħmira minn razez defiċjenti f'nukleażi mitokondrijali. Mol. Cell Biol. 9, 3323–3331 (1989).
44. AW Johnson, RD Kolodner, Il-letalità sintetika ta' mutanti sep1 (xrn1) ski2 u sep1 (xrn1) ski3 ta' Saccharomyces cerevisiae hija indipendenti mill-virus qattiel u tissuġġerixxi rwol ġenerali għal dawn il-ġeni fil-kontroll tat-traduzzjoni. Mol. Cell Biol. 15, 2719–2727 (1995).
45. C. Stark et al., BioGRID: Repożitorju ġenerali għal settijiet ta' dejta ta' interazzjoni. Aċidi Nukleiċi Res. 34, D535–539 (2006).
46. L. Espert et al., ISG20, RNase ġdid indott mill-interferon speċifiku għal RNA single-stranded, jiddefinixxi mogħdija antivirali alternattiva kontra viruses ġenomiċi RNA. J. Biol. Chem. 278, 16151–16158 (2003).
47. T. Hanekamp, PE Thorsness, YNT20, soppressor tal-bypass ta' yme1 yme2, jikkodifika 3'-5' exonuclease putattiv lokalizzat fil-mitokondrija ta' Saccharomyces cerevisiae. Curr. Genet 34, 438–448 (1999).
48. A. van Hoof, P. Lennertz, R. Parker, Tliet membri konservati tal-familja RNase D għandhom funzjonijiet uniċi u li jikkoinċidu fl-ipproċessar ta '5S, 5.8S, U4, U5, RNase MRP, u RNase P RNAs fil-ħmira . EMBO J. 19, 1357–1365 (2000).
49. M. Dwivedi, NC Laddha, R. Begum, Korrelazzjoni ta 'żieda fl-espressjoni MYG1 u l-polimorfiżmu promotur tagħha mal-progressjoni tal-marda u suxxettibilità ogħla f'pazjenti vitiligo. J. Dermatol. Sci. 71, 195–202 (2013).
50. K. Kingo et al., MYG1, ġene ġdid relatat mal-melanocyte, għandu espressjoni elevata fil-vitiligo. J. Dermatol. Sci. 44, 119–122 (2006).
51. IB Andika, A. Jamal, H. Kondo, N. Suzuki, kumpless SAGA jimmedja l-up-regulation traskrizzjoni tas-sajlenser RNA antivirali. Proc. Natl. Acad. Sci. USA 114, E3499–E3506 (2017).
52. SG Sobel, SL Wolin, Żewġ proteini li fihom il-motif tal-ħmira La huma proteini li jgħaqqdu l-RNA li jassoċjaw mal-poliribosomi. Mol. Biol. Ċellula 10, 3849–3862 (1999).
53. A. Proweller, JS Butler, Assoċjazzjoni ribosomali ta 'proteina li torbot poly(A) f'Saccharomyces cerevisiae defiċjenti ta' poly(A). J. Biol. Chem. 271, 10859–10865 (1996).
54. DE Gordon et al., Mappa tal-interazzjoni tal-proteini SARS-CoV-2 tiżvela miri għar-riużu tad-droga. Natura 583, 459–468 (2020).
55. O. Brandman et al., Kumpless ta 'kontroll tal-kwalità marbut mar-ribosomi iqajjem degradazzjoni ta' peptidi naxxenti u jindika stress tat-traduzzjoni. Ċellula 151, 1042–1054 (2012).
56. J. Anckar, L. Sistonen, Ir-Regolament tal-funzjoni HSF1 fir-rispons għall-istress tas-sħana: Implikazzjonijiet fit-tixjiħ u l-mard. Annu. Dun Biochem. 80, 1089–1115 (2011).
57. J. Li, J. Labbadia, RI Morimoto, Rethinking HSF1 fl-istress, l-iżvilupp u s-saħħa organiżmu. Xejriet Cell Biol. 27, 895–905 (2017).
58. PK Sorger, HR Pelham, Purifikazzjoni u karatterizzazzjoni ta' proteina li torbot element ta' xokk tas-sħana mill-ħmira. EMBO J. 6, 3035–3041 (1987).
59. EJ Solis et al., Id-definizzjoni tal-funzjoni essenzjali tal-ħmira Hsf1 tiżvela programm ta 'traskrizzjoni kompatt għaż-żamma tal-proteostasi ewkarjotika. Mol. Ċellula 63, 60–71 (2016).
60. JR Glover, S. Lindquist, Hsp104, Hsp70, and Hsp40: Sistema ġdida ta 'chaperoni li ssalva proteini aggregati qabel. Ċellula 94, 73–82 (1998).
61. Z. Li et al., Esplorazzjoni sistematika tal-funzjoni tal-ġene tal-ħmira essenzjali b'mutanti sensittivi għat-temperatura. Nat. Bijoteknoloġija. 29, 361–367 (2011).
62. RY Zhao, Ħmira għar-riċerka tal-virus. Mikrob. Ċellula 4, 311–330 (2017).
63. T. Panavas, E. Serviene, J. Brasher, PD Nagy, L-iskrin kollu tal-ġenoma tal-ħmira jiżvela settijiet differenti ta 'ġeni ospitanti li jaffettwaw ir-replikazzjoni ta' viruses RNA. Proc. Natl. Acad. Sci. USA 102, 7326–7331 (2005).
64. Y. Ohtake, RB Wickner, Il-propagazzjoni tal-virus tal-ħmira tiddependi b'mod kritiku fuq il-konċentrazzjoni tas-subunità ribosomali ħielsa 60S. Mol. Cell Biol. 15, 2772–2781 (1995).
65. Il-kumplessi tal-modifika tal-kromatina SB Kremer, DS Gross, SAGA u Rpd3 jirregolaw b'mod dinamiku l-istruttura u l-espressjoni tal-ġeni tax-xokk tas-sħana. J. Biol. Chem. 284, 32914–32931 (2009).
66. MD Leach et al., Hsf1 u Hsp90 orkestraw tibdil traskrizzjoni globali dipendenti mit-temperatura u arkitettura tal-kromatin f'Candida albicans. Nat. Komun. 7, 11704 (2016).
67. CS Sitron, JH Park, JM Giafaglione, O. Brandman, Aggregazzjoni ta 'dnub CAT jimblokka d-degradazzjoni tagħhom u tikkawża proteotossiċità f'S. cerevisiae. PLoS One 15, e0227841 (2020).
68. L. Magtanong et al., In-netwerks ta 'interazzjoni ġenetika ta' soppressjoni tad-dożaġġ itejbu d-dijagrammi tal-wajers funzjonali taċ-ċellula. Nat. Bijoteknoloġija. 29, 505–511 (2011).
69. V. Bilanchone et al., Ty3 retrotransposon hijacks it-tgħammir tal-korpi tal-ipproċessar tal-RNA tal-ħmira biex jinfettaw ġenomi ġodda. PLoS Genet. 11, e1005528 (2015).
70. L. Ruan et al., Proteostasi ċitosolika permezz ta 'importazzjoni ta' proteini mitwija ħażin fil-mitokondrija. Natura 543, 443–446 (2017).


